1. 古生物学の最重要事実:「海に恐竜はいなかった」
一般にモササウルスやプレシオサウルスは「海の恐竜」と誤解されがちですが、学術的な分類上、恐竜(Dinosauria)は「直立歩行に適応した四肢を骨盤の真下に持つ陸棲主竜類」と定義されています。したがって、中生代の海洋を生息圏とした爬虫類たちは、恐竜とは全く異なる系統から海へと進出した「海生爬虫類(Marine Reptiles)」です。
陸上で恐竜が進化を謳歌していたのと完全に並行して、海中では異なる爬虫類グループが次々と海洋適応を遂げ、食物連鎖の頂点ピラミッドを形成していました。彼らの存在を知ることは、中生代の生命圏全体を俯瞰する上で不可欠なピースです。
2. 三大海生爬虫類グループの進化と覇権の交代劇
中生代の海では、時代ごとに支配的なグループが劇的に入れ替わるダイナミックな交代劇が繰り広げられました。
🦈 海を支配した3大海洋爬虫類系統
- 魚竜目(Ichthyosauria):
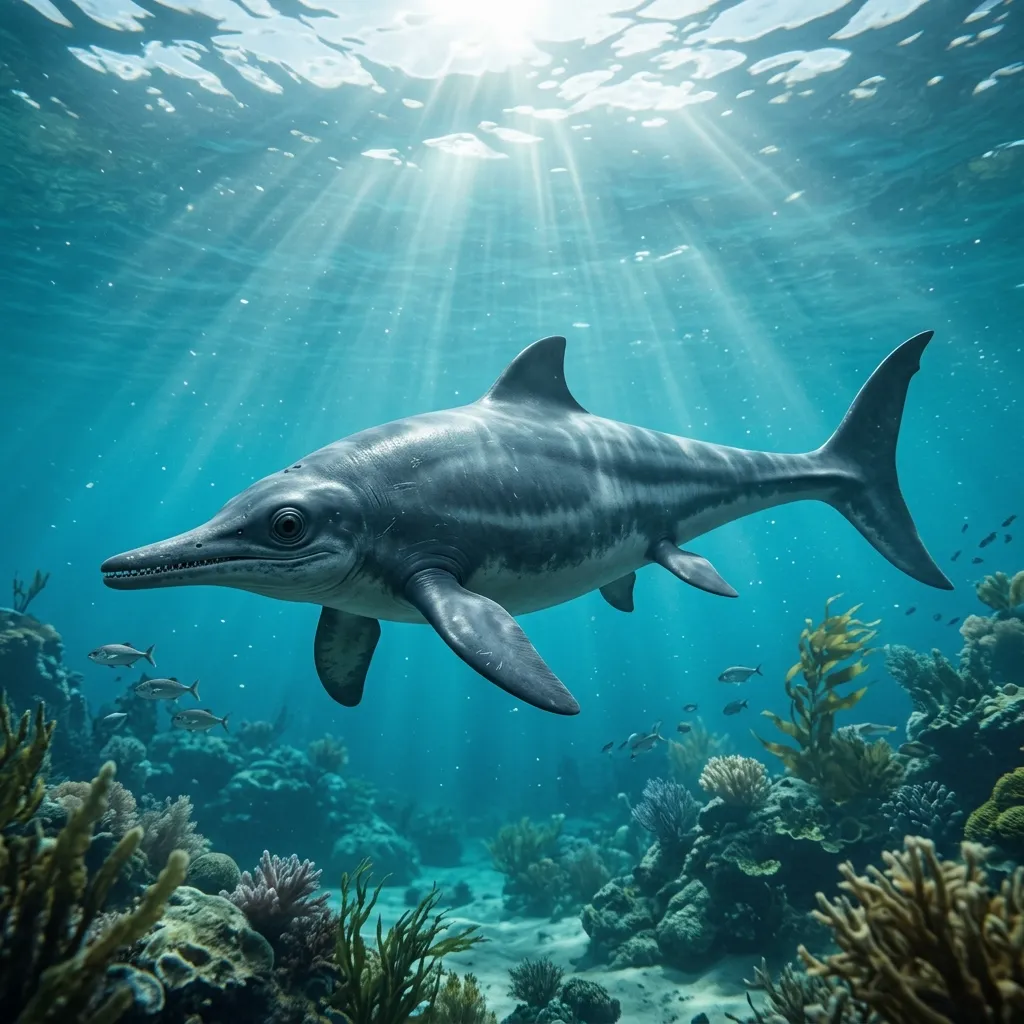
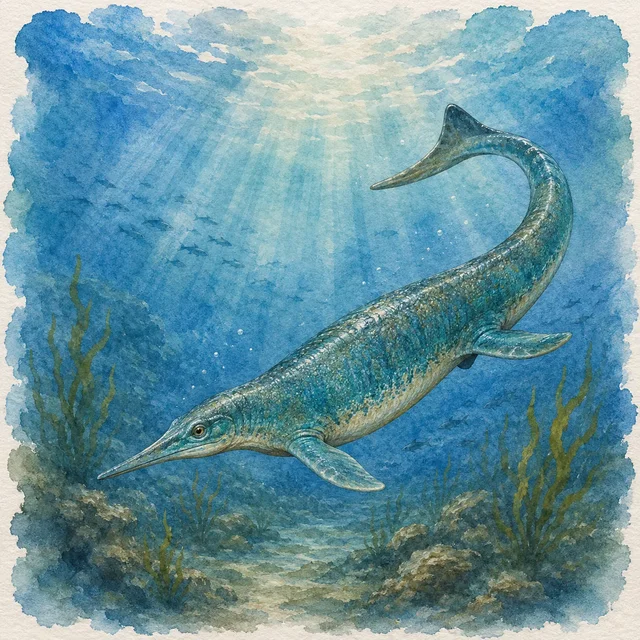
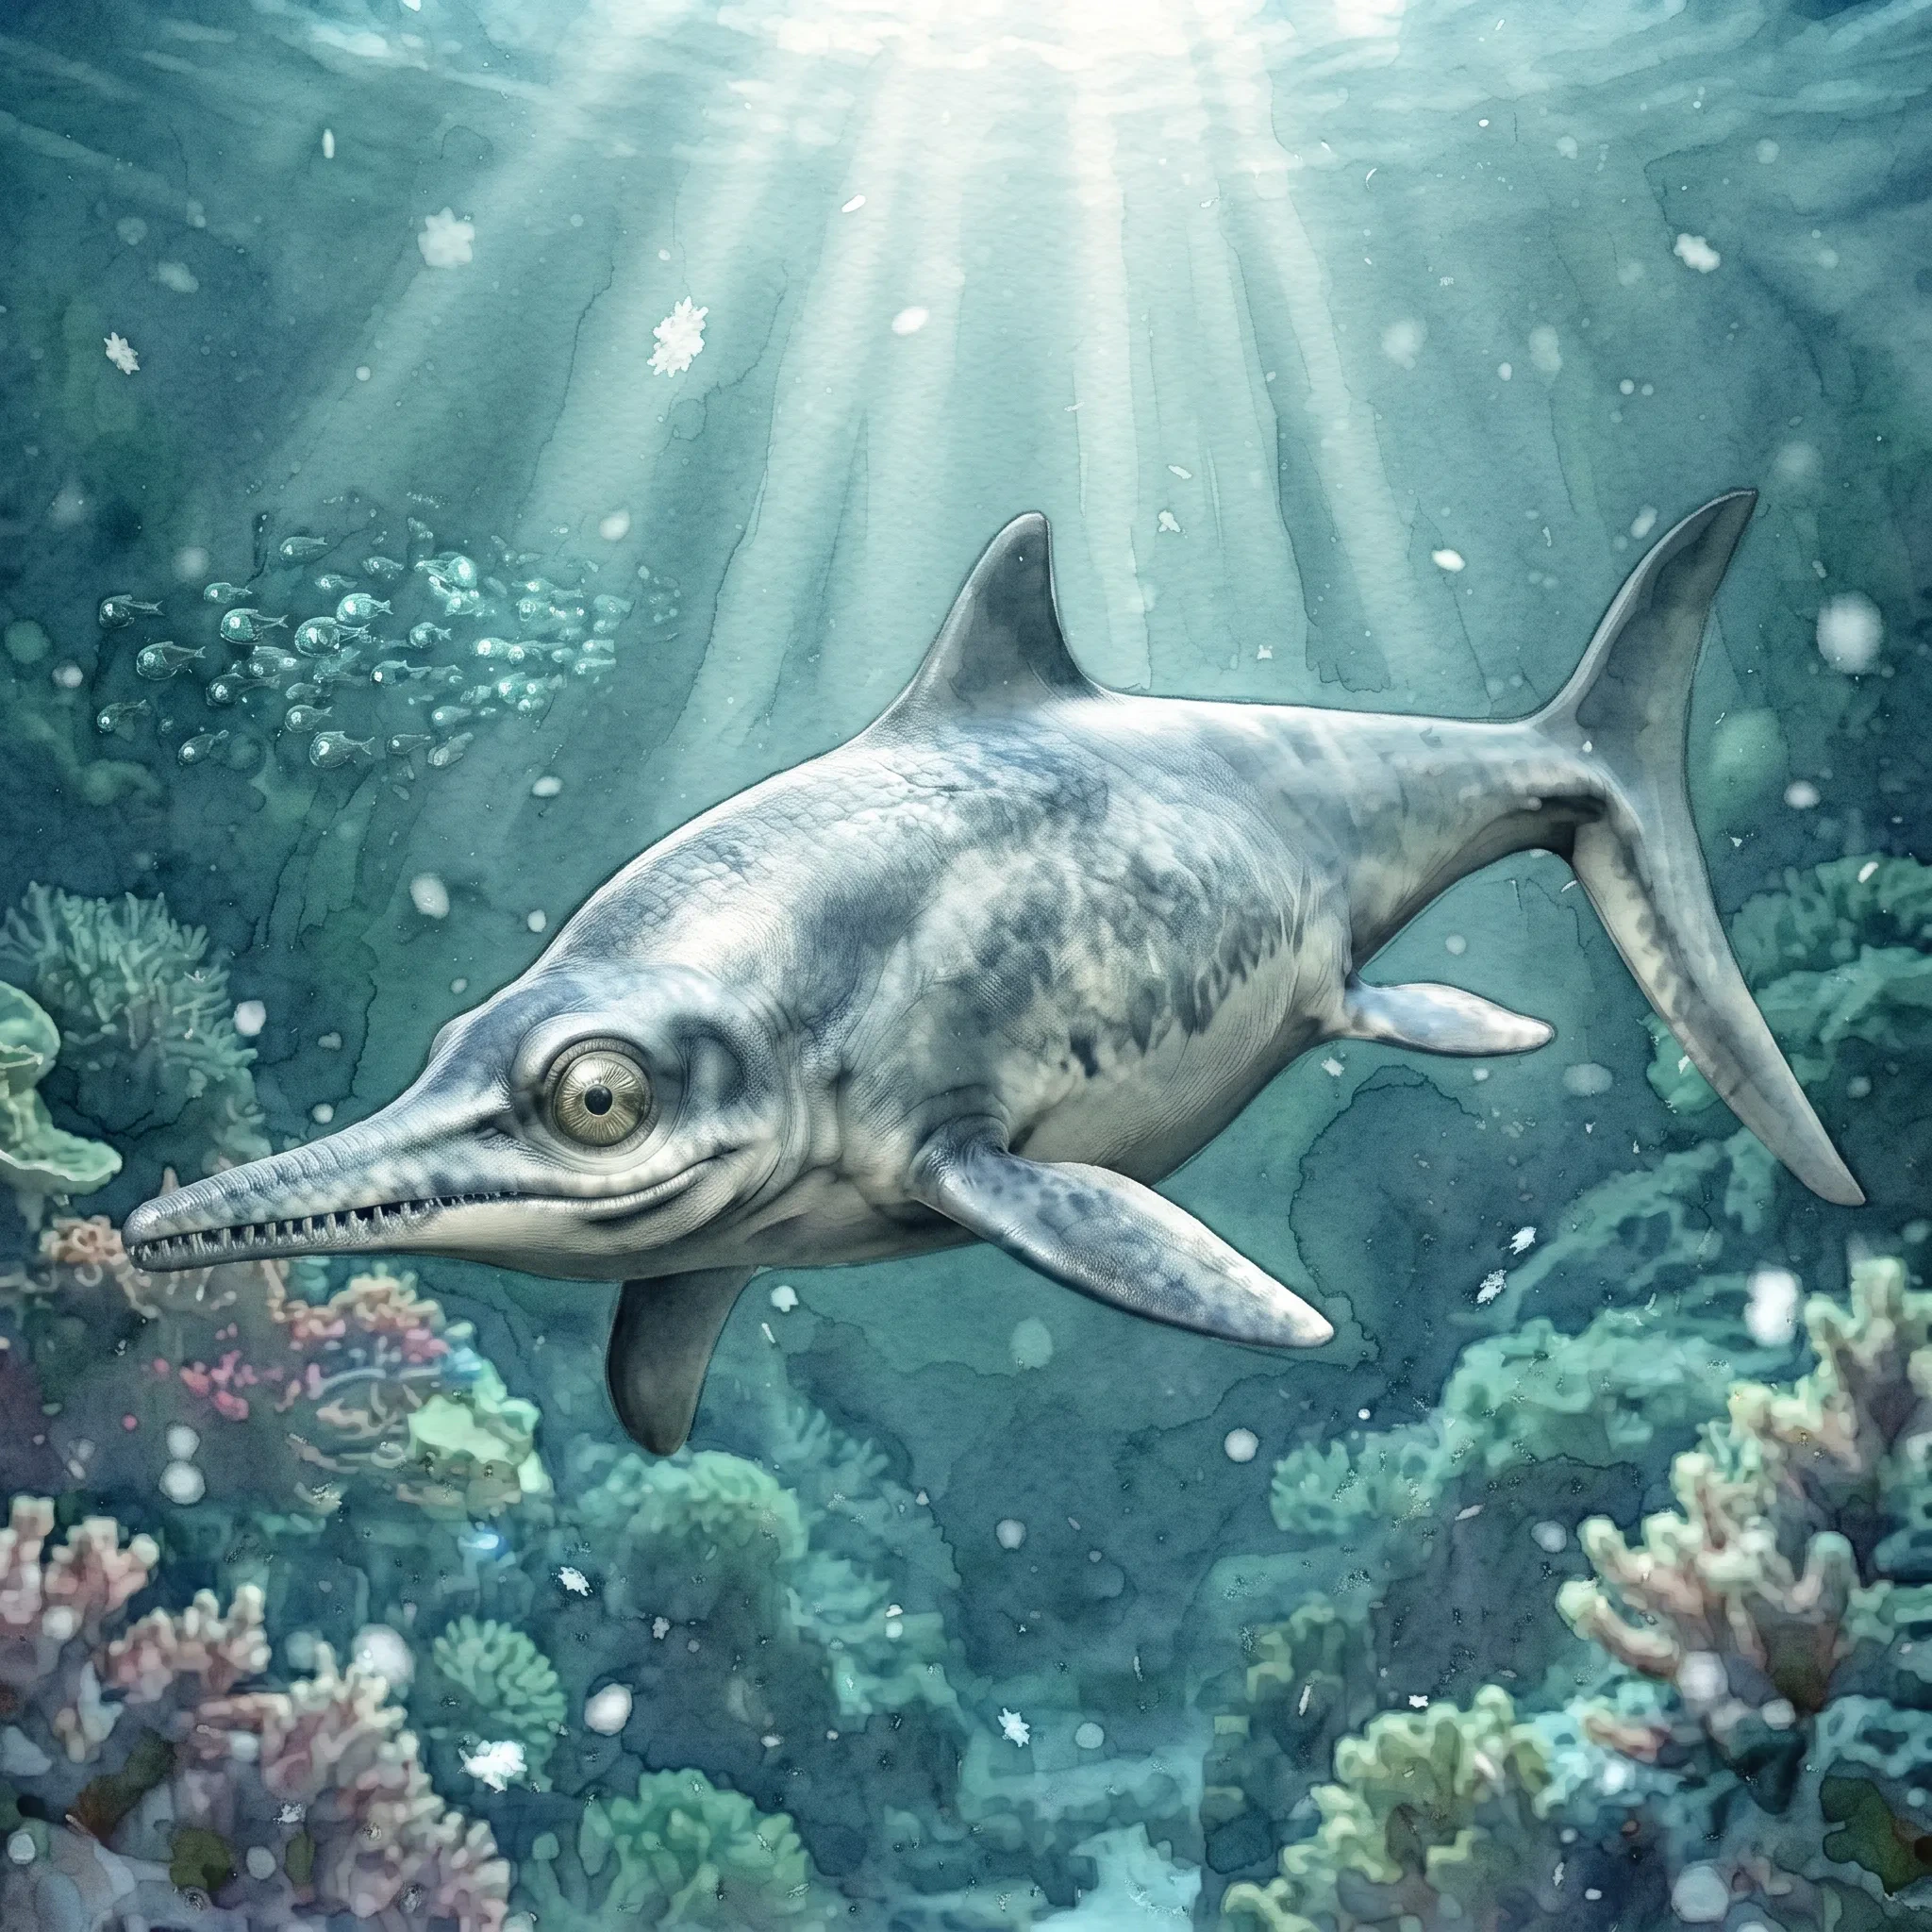
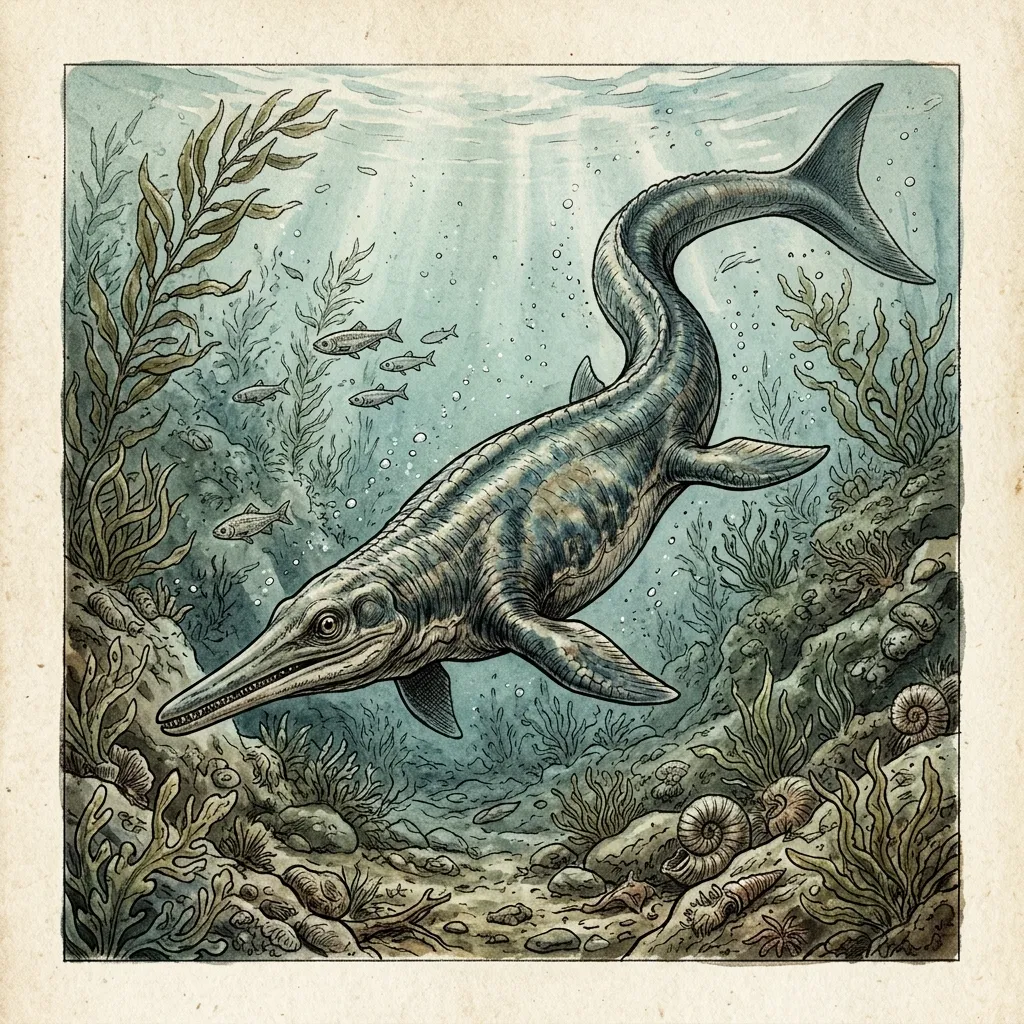
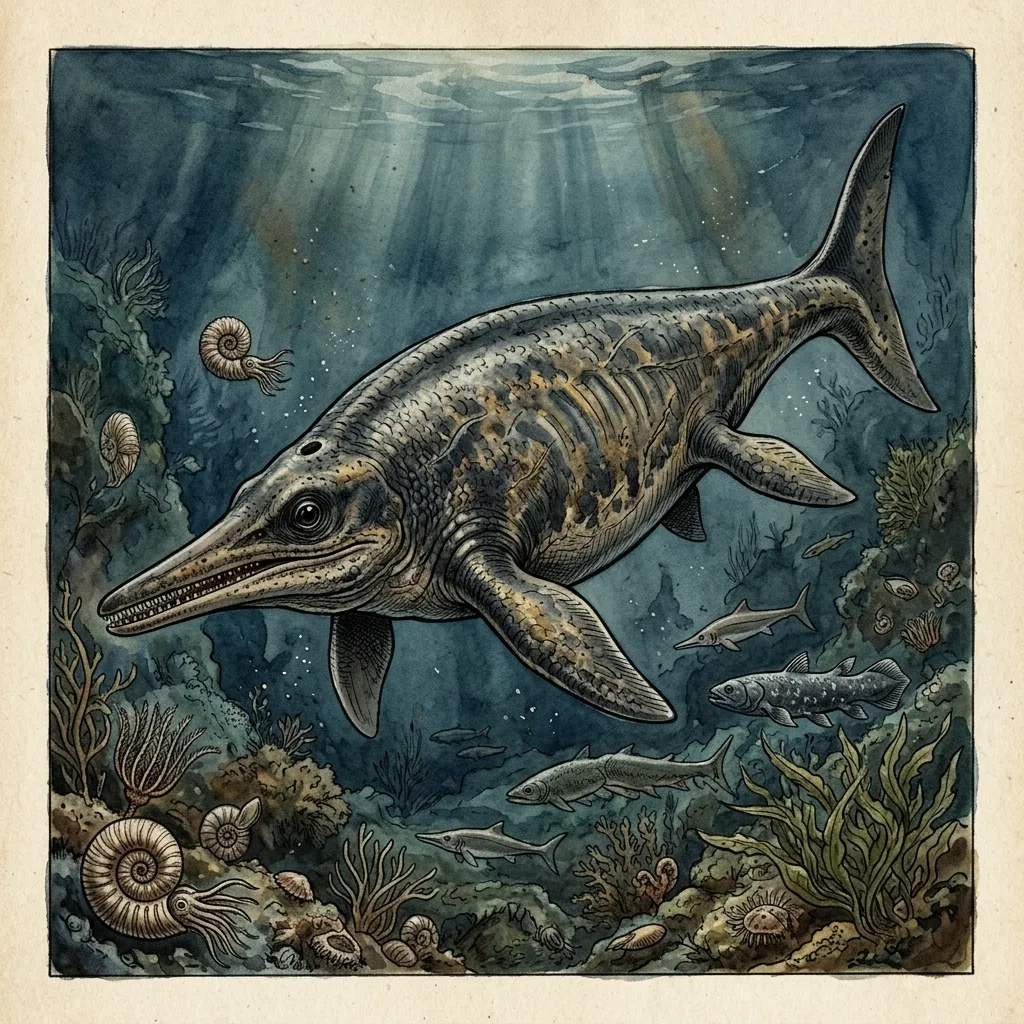
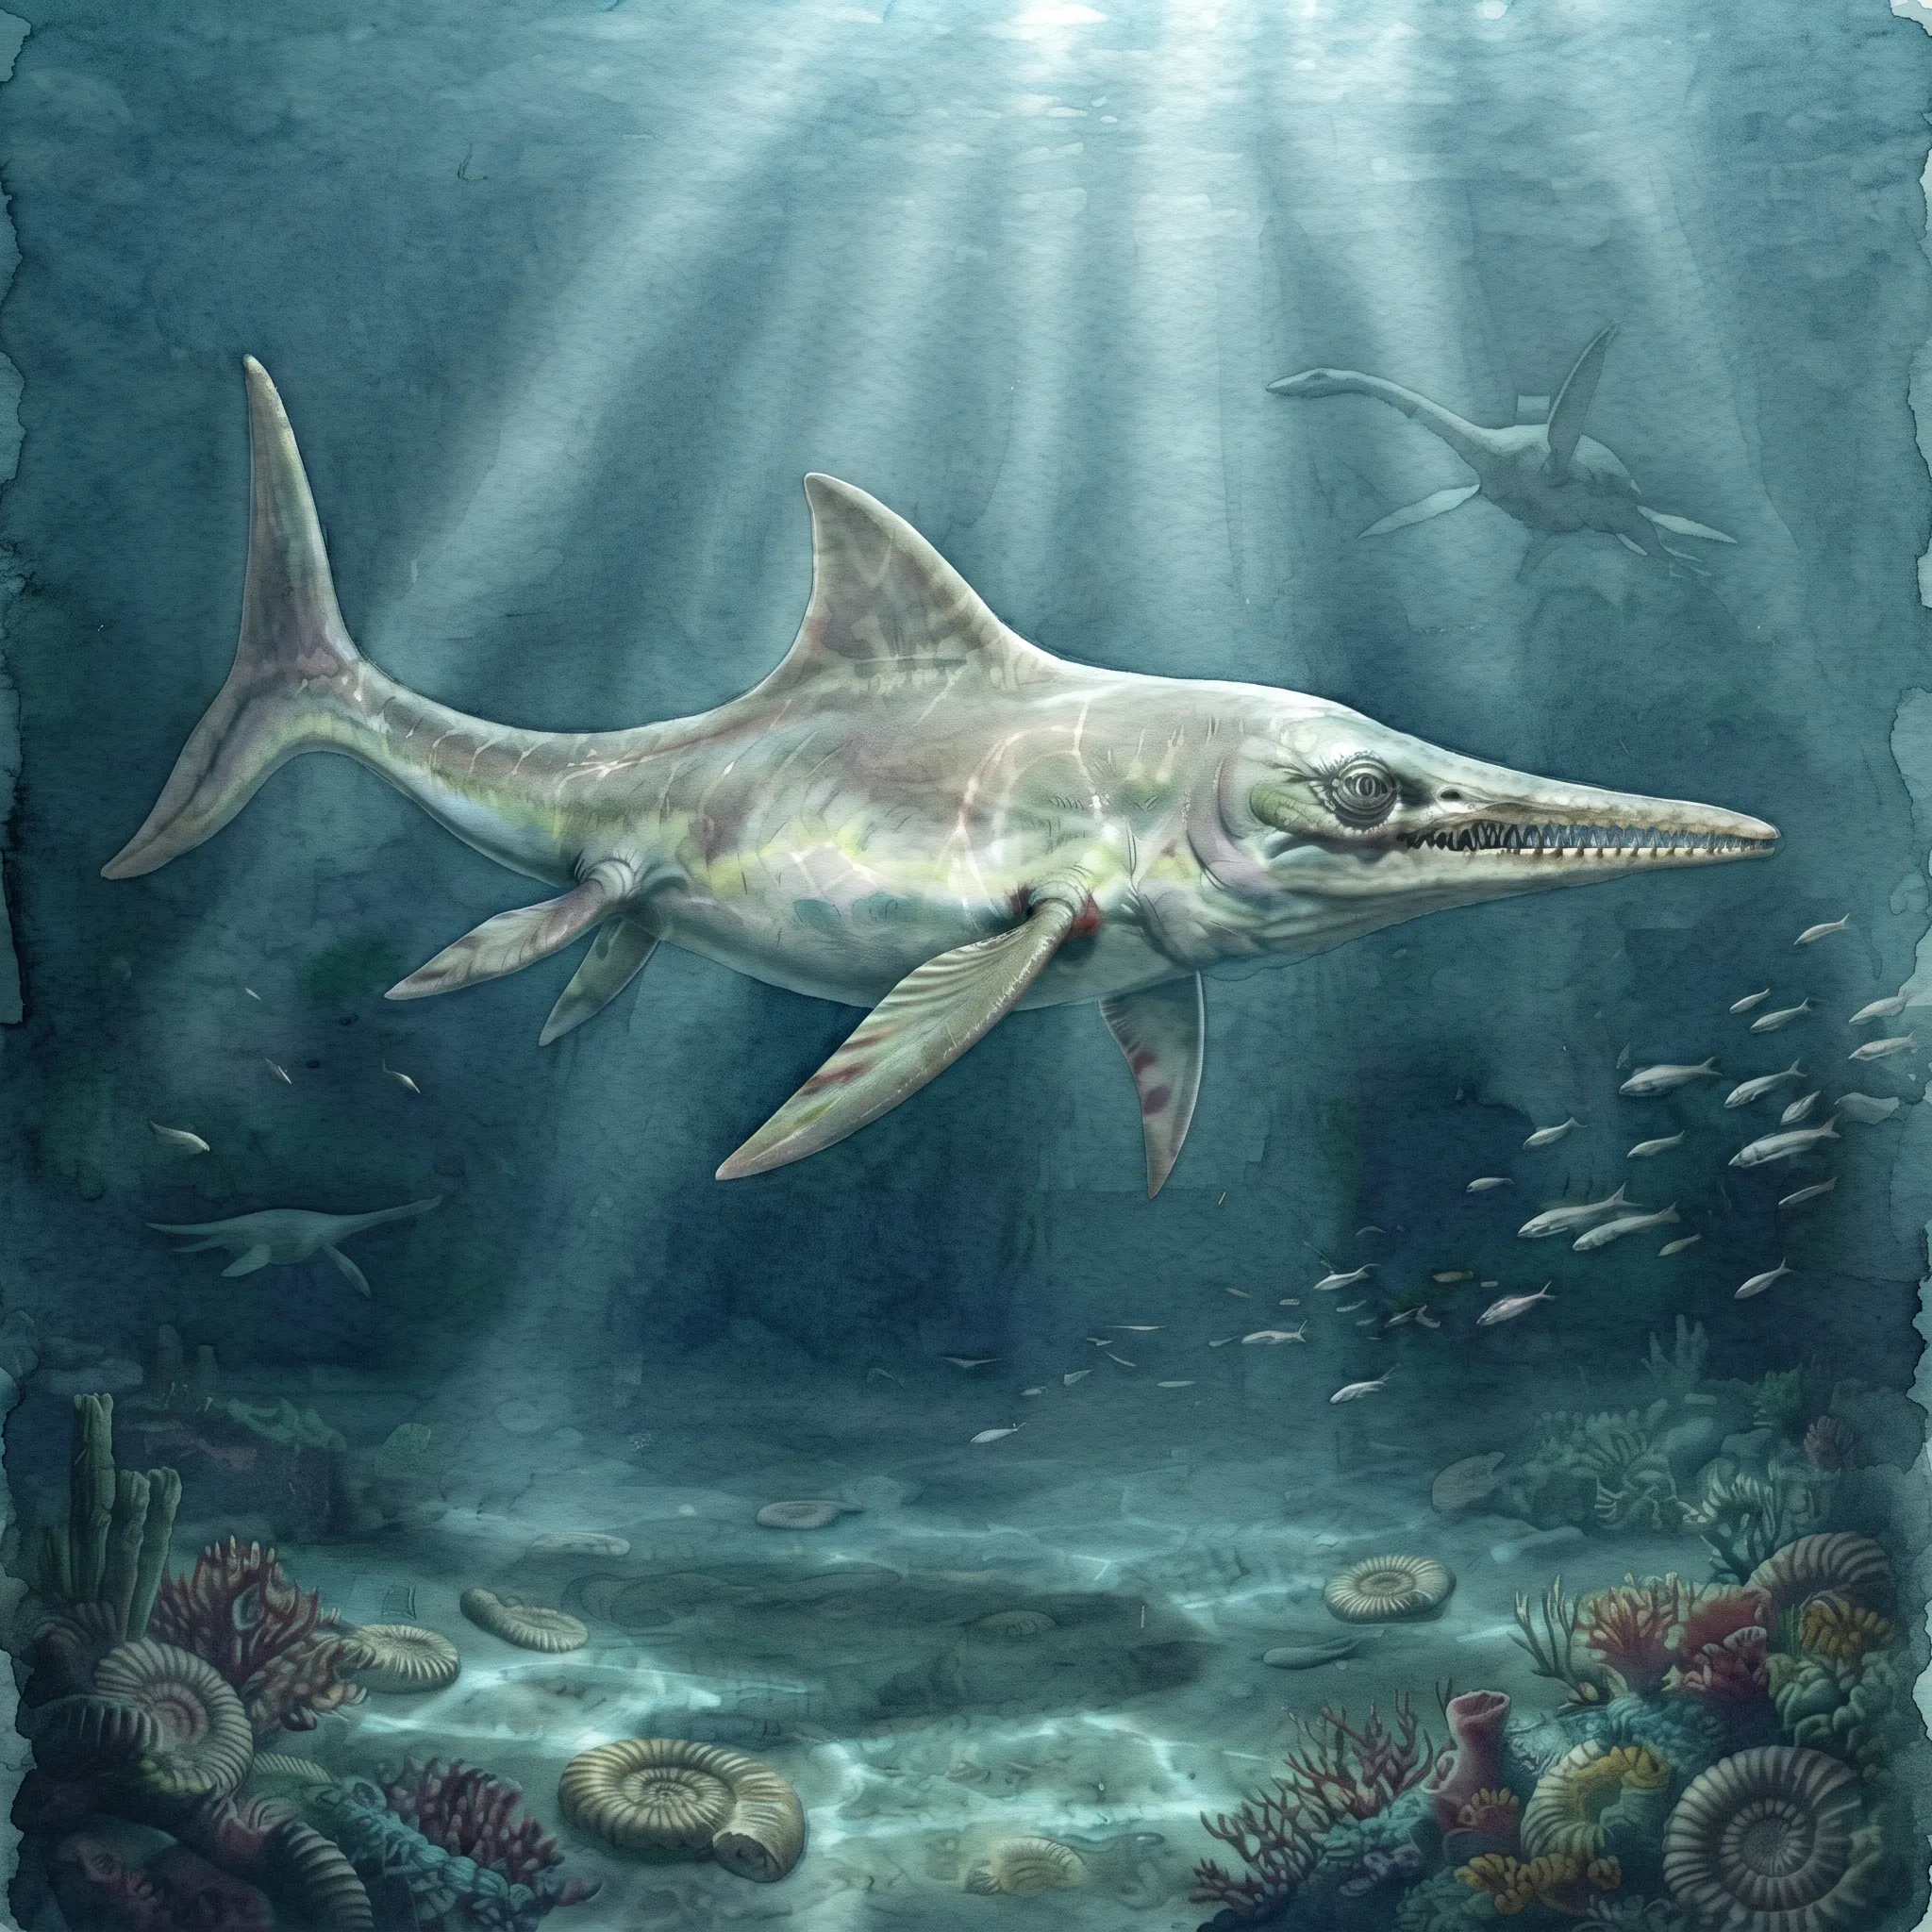
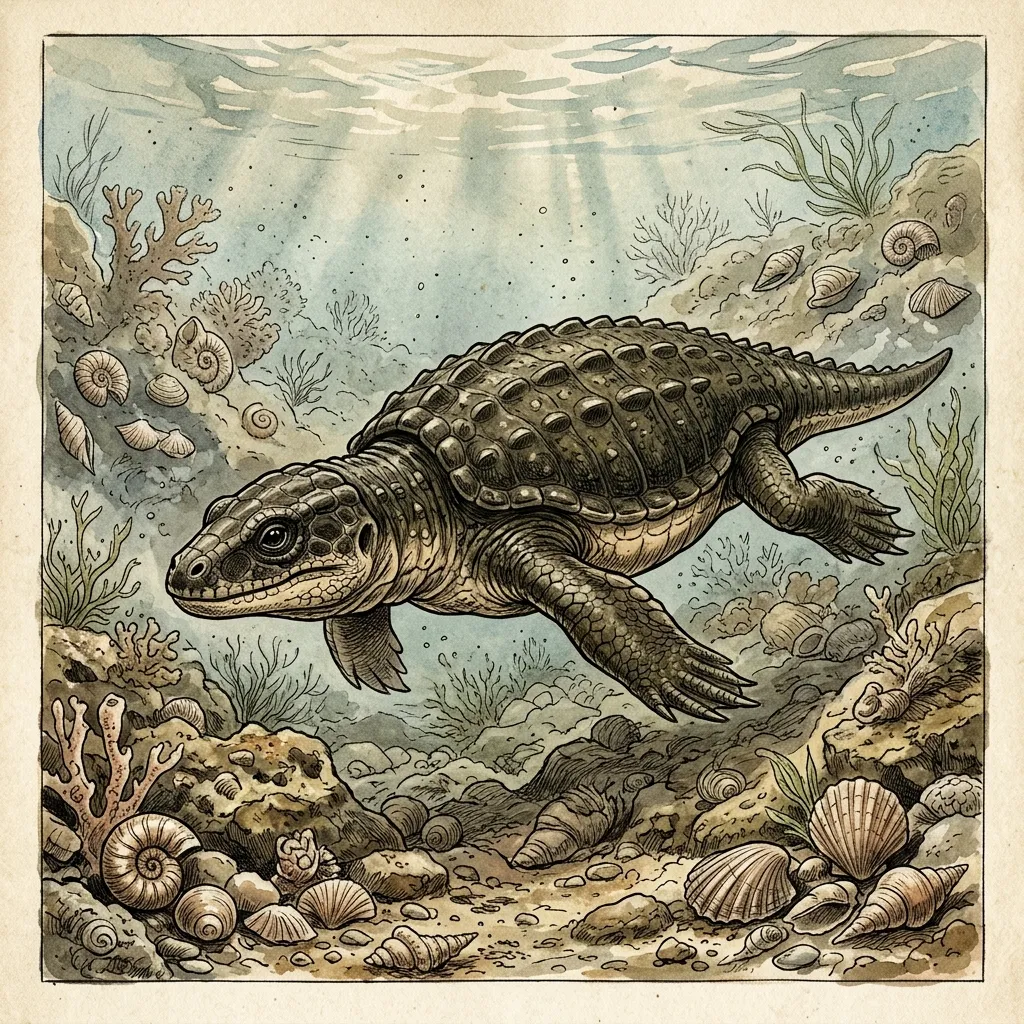
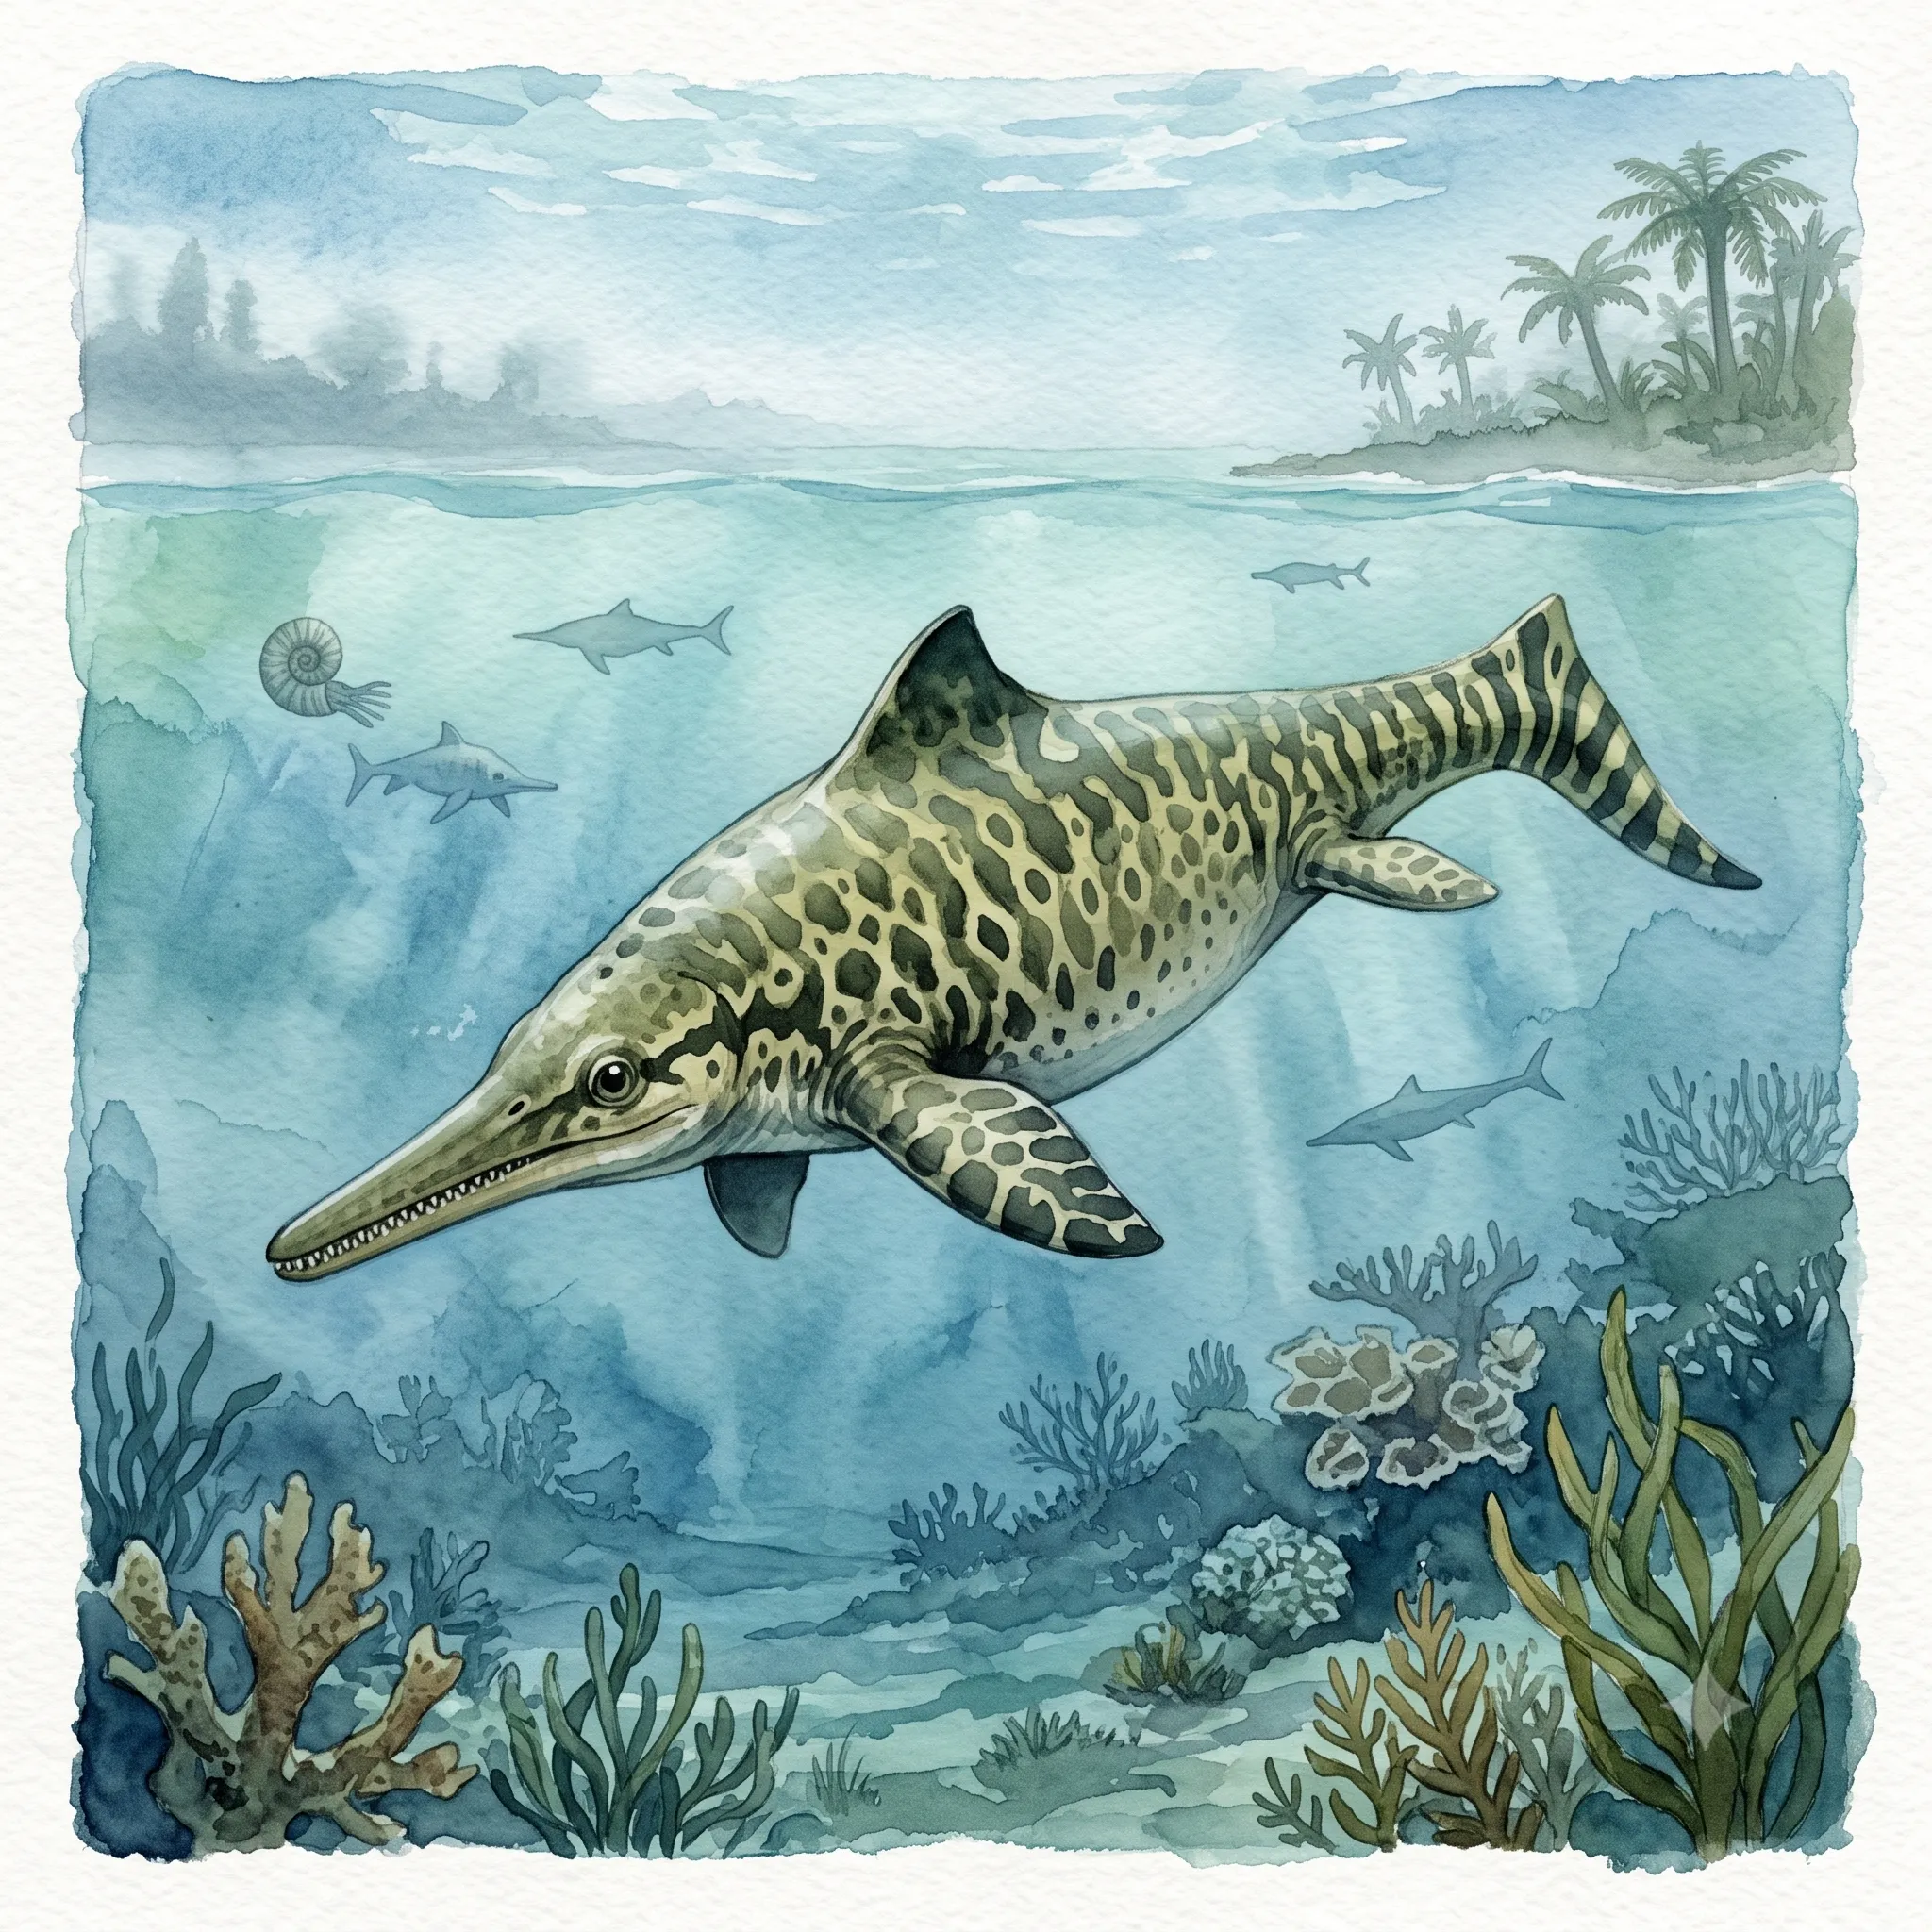
三畳紀前期(ウタツサウルス等)に出現し、ジュラ紀に全盛期を迎えたグループ。流線型のマグロ・イルカ型ボディ、垂直の尾鰭、巨大な眼窩(オフタルモサウルス)を持ち、深海潜水と高速遊泳に特化。 - 首長竜目(Plesiosauria):
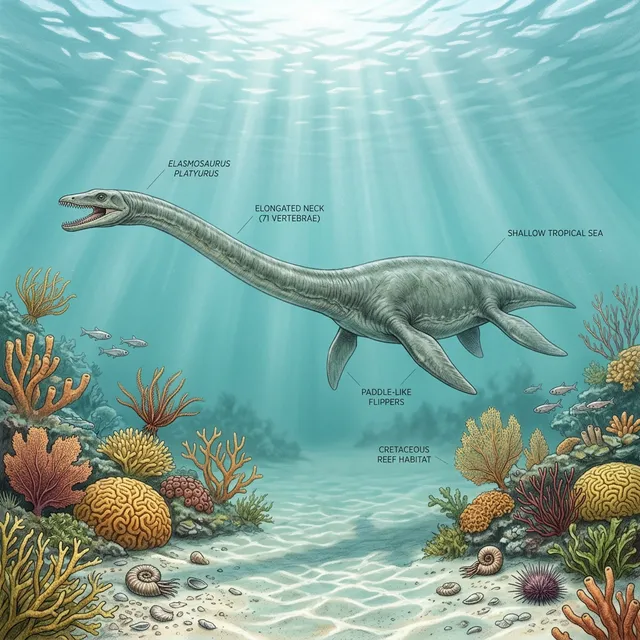
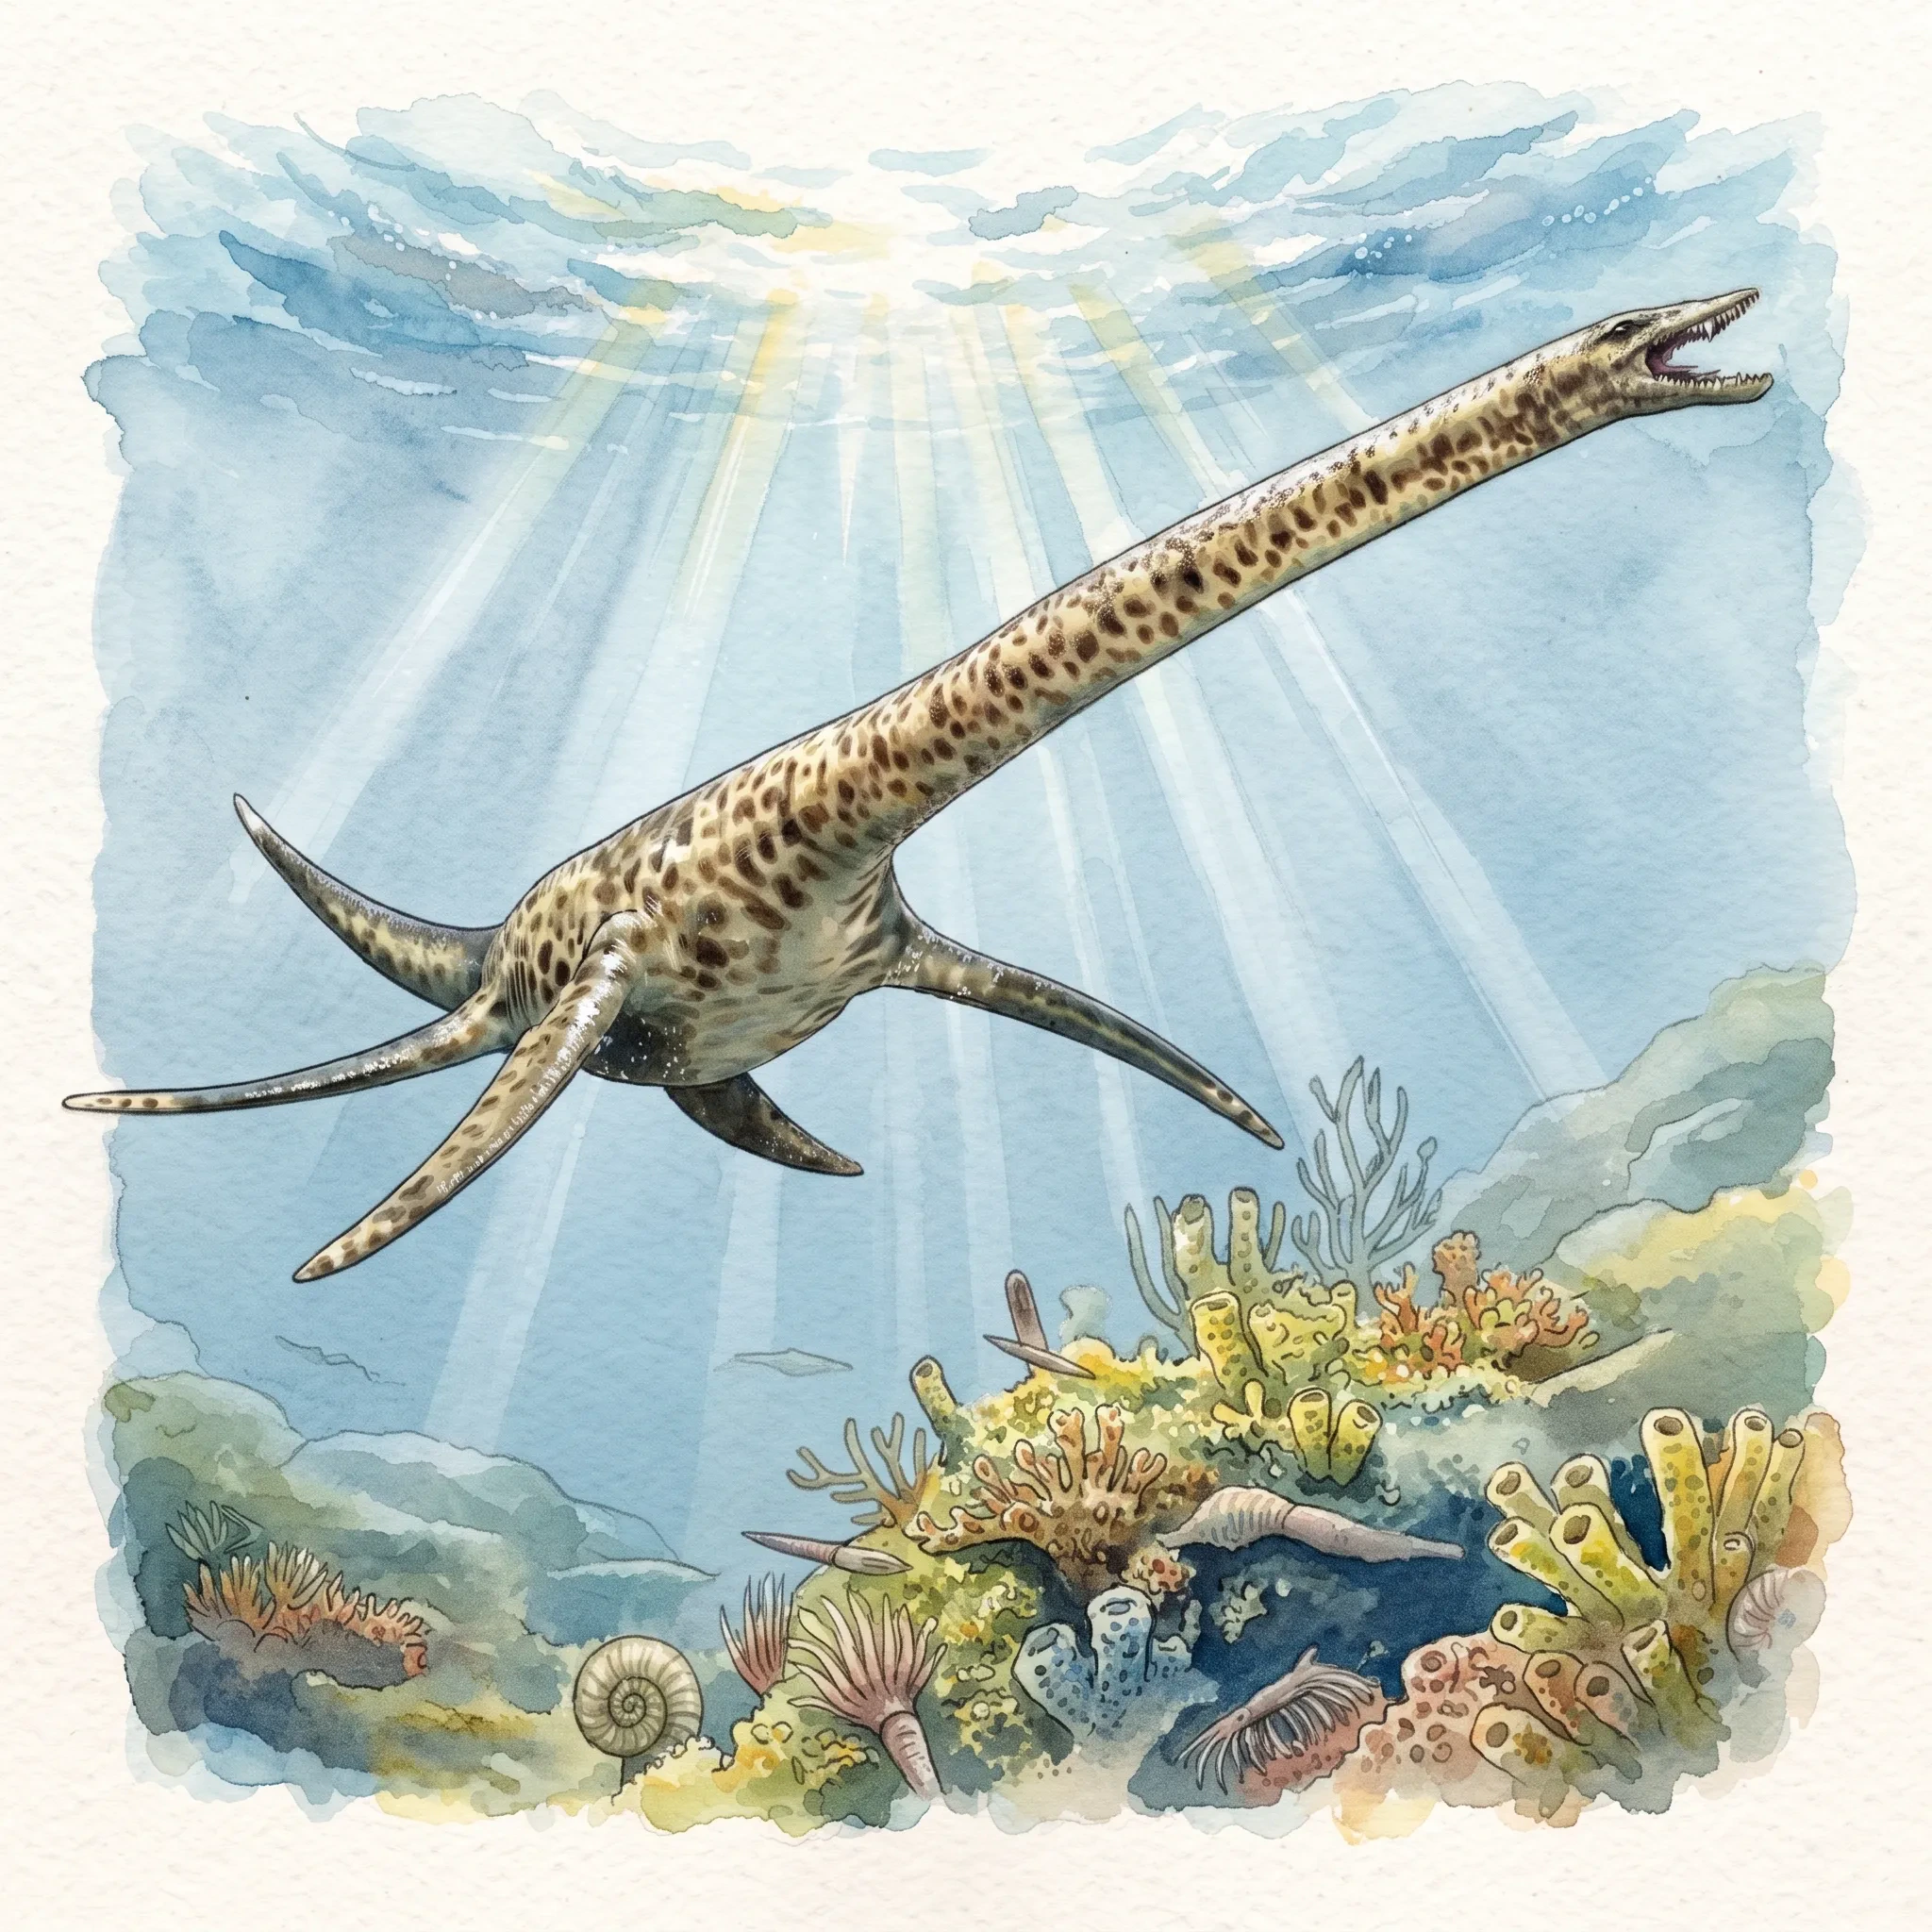
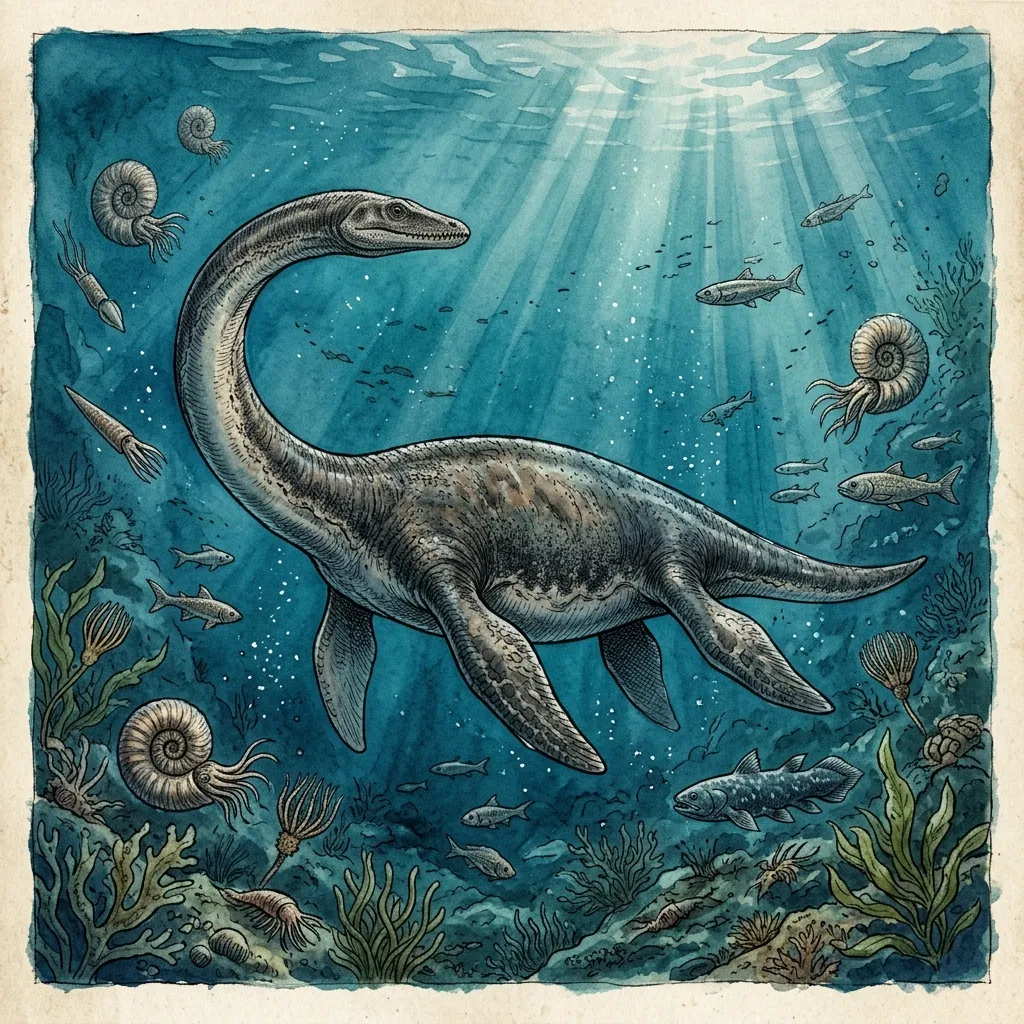
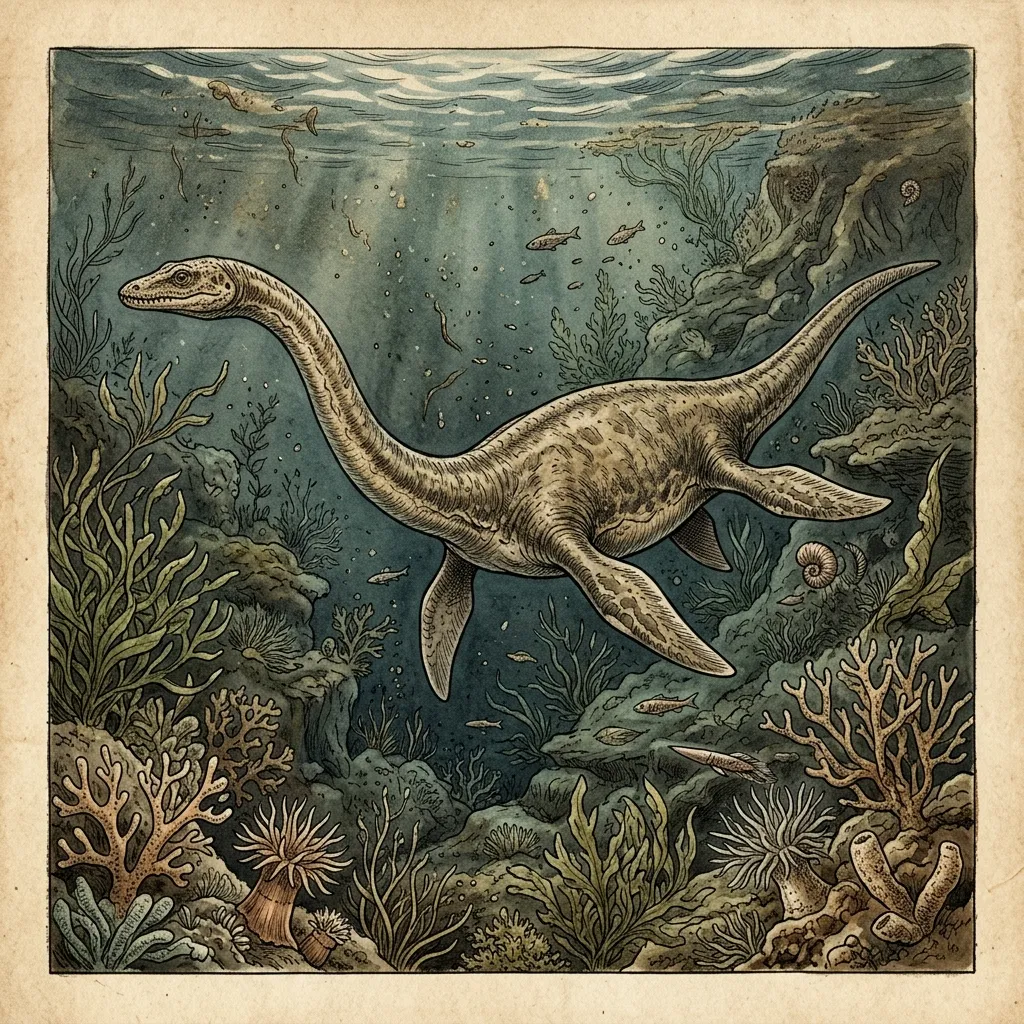
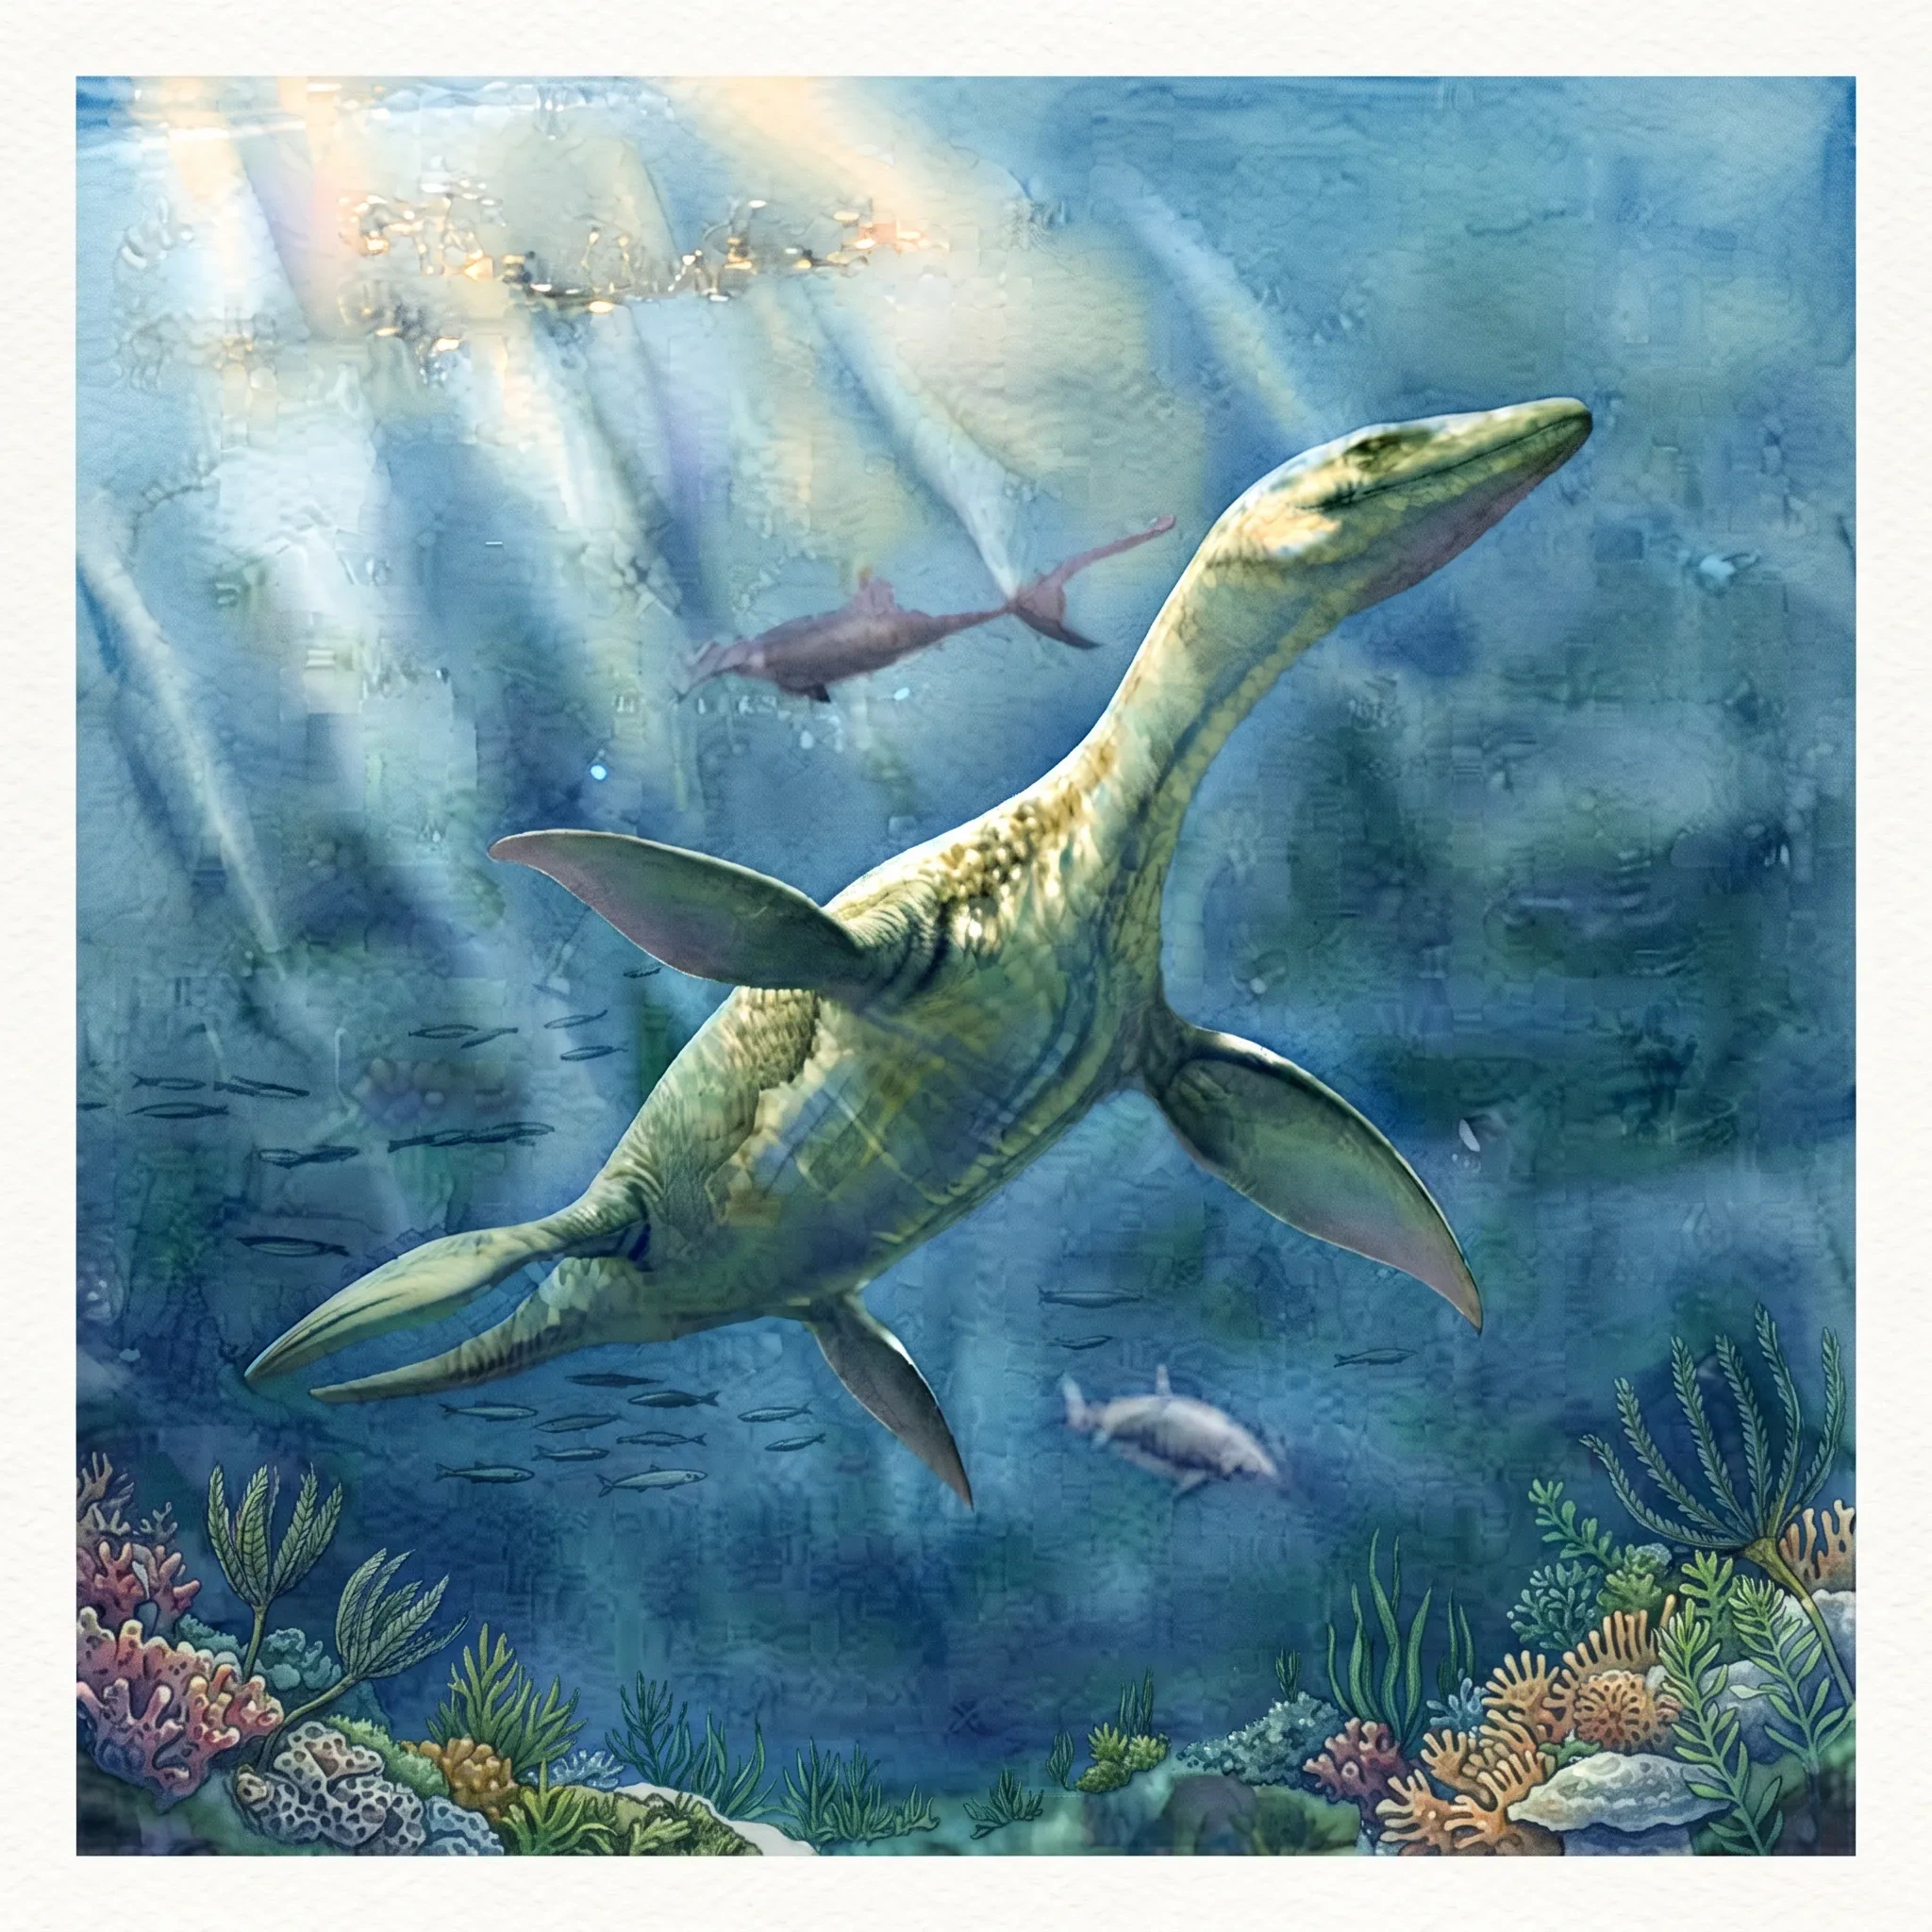
三畳紀末から白亜紀末まで生存。4つのヒレで水面下を「羽ばたく」ように進む。全長の半分以上が首を占める長頸型(プレシオサウルス、エラスモサウルス、フタバサウルス)と、短頸で超巨大な頭骨を持つ超大型肉食型(プリオサウルス、クロノサウルス)に二極分化。 - モササウルス科(Mosasauridae):
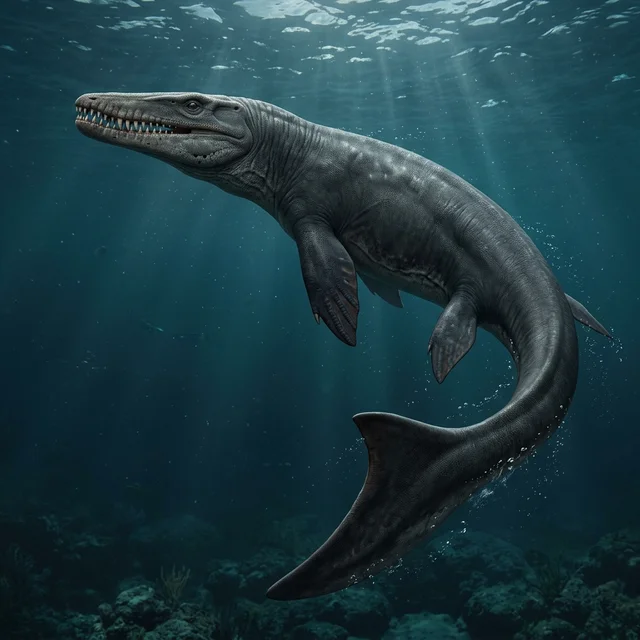
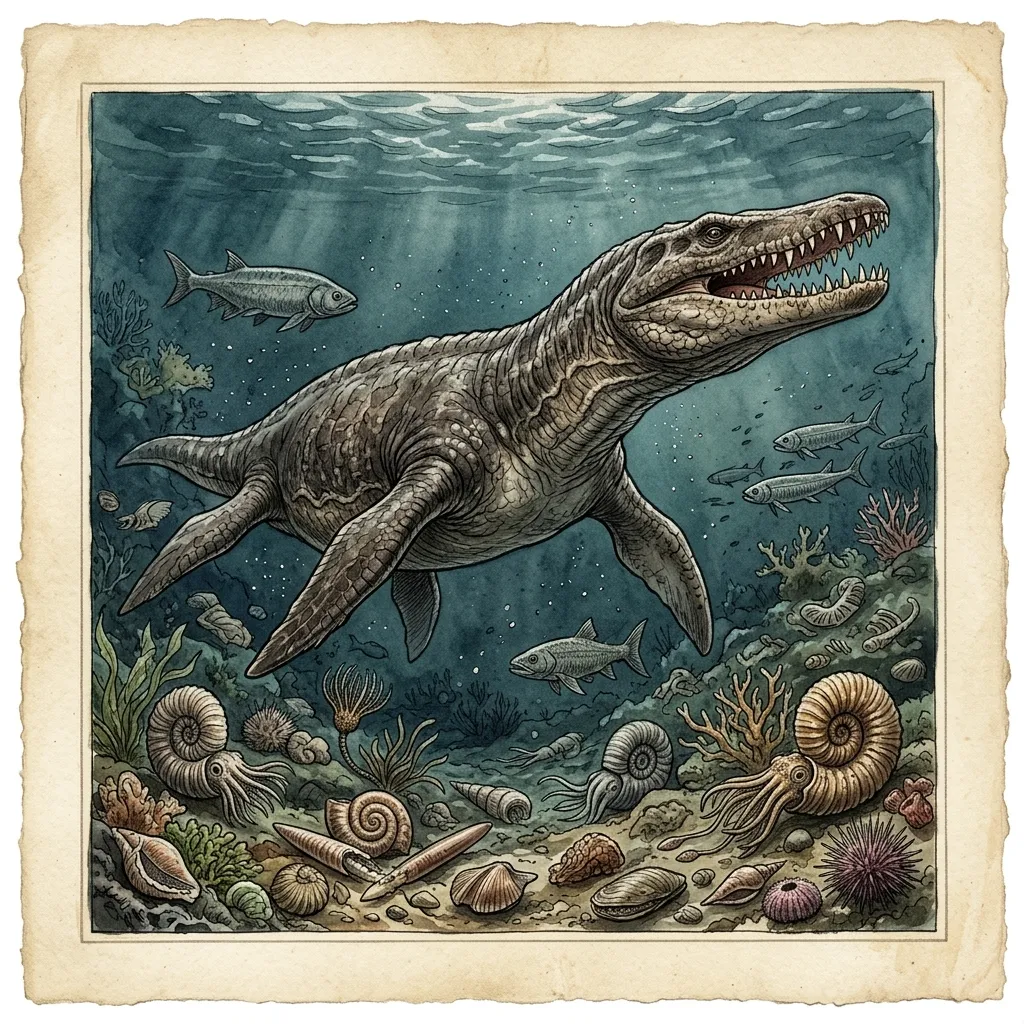
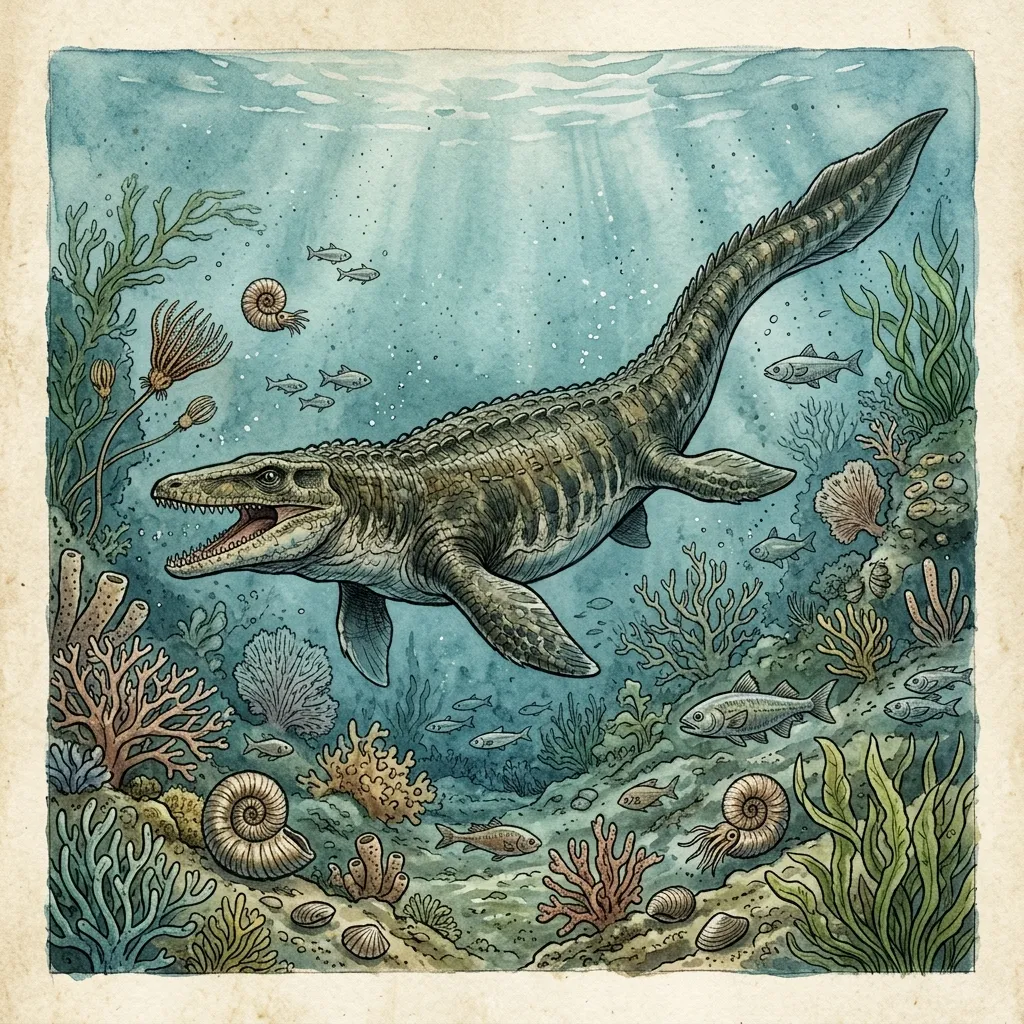
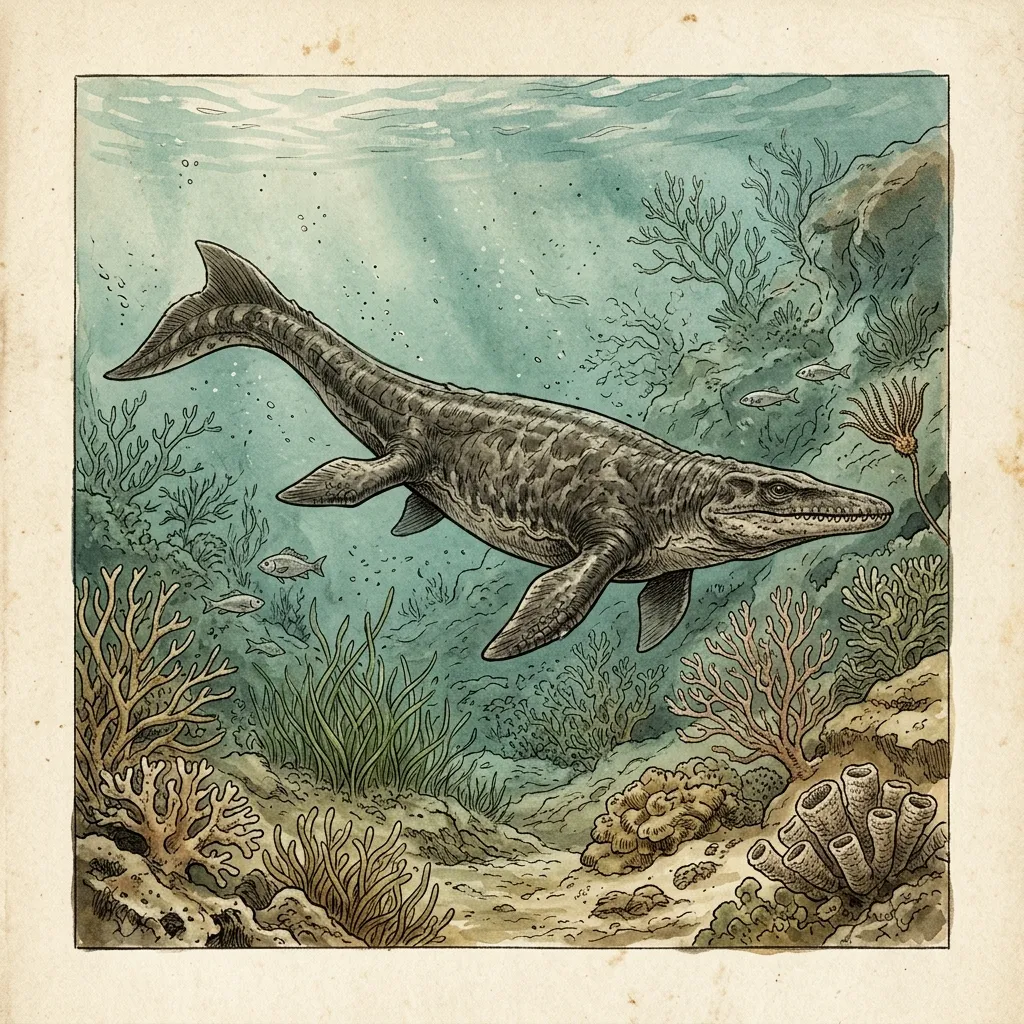
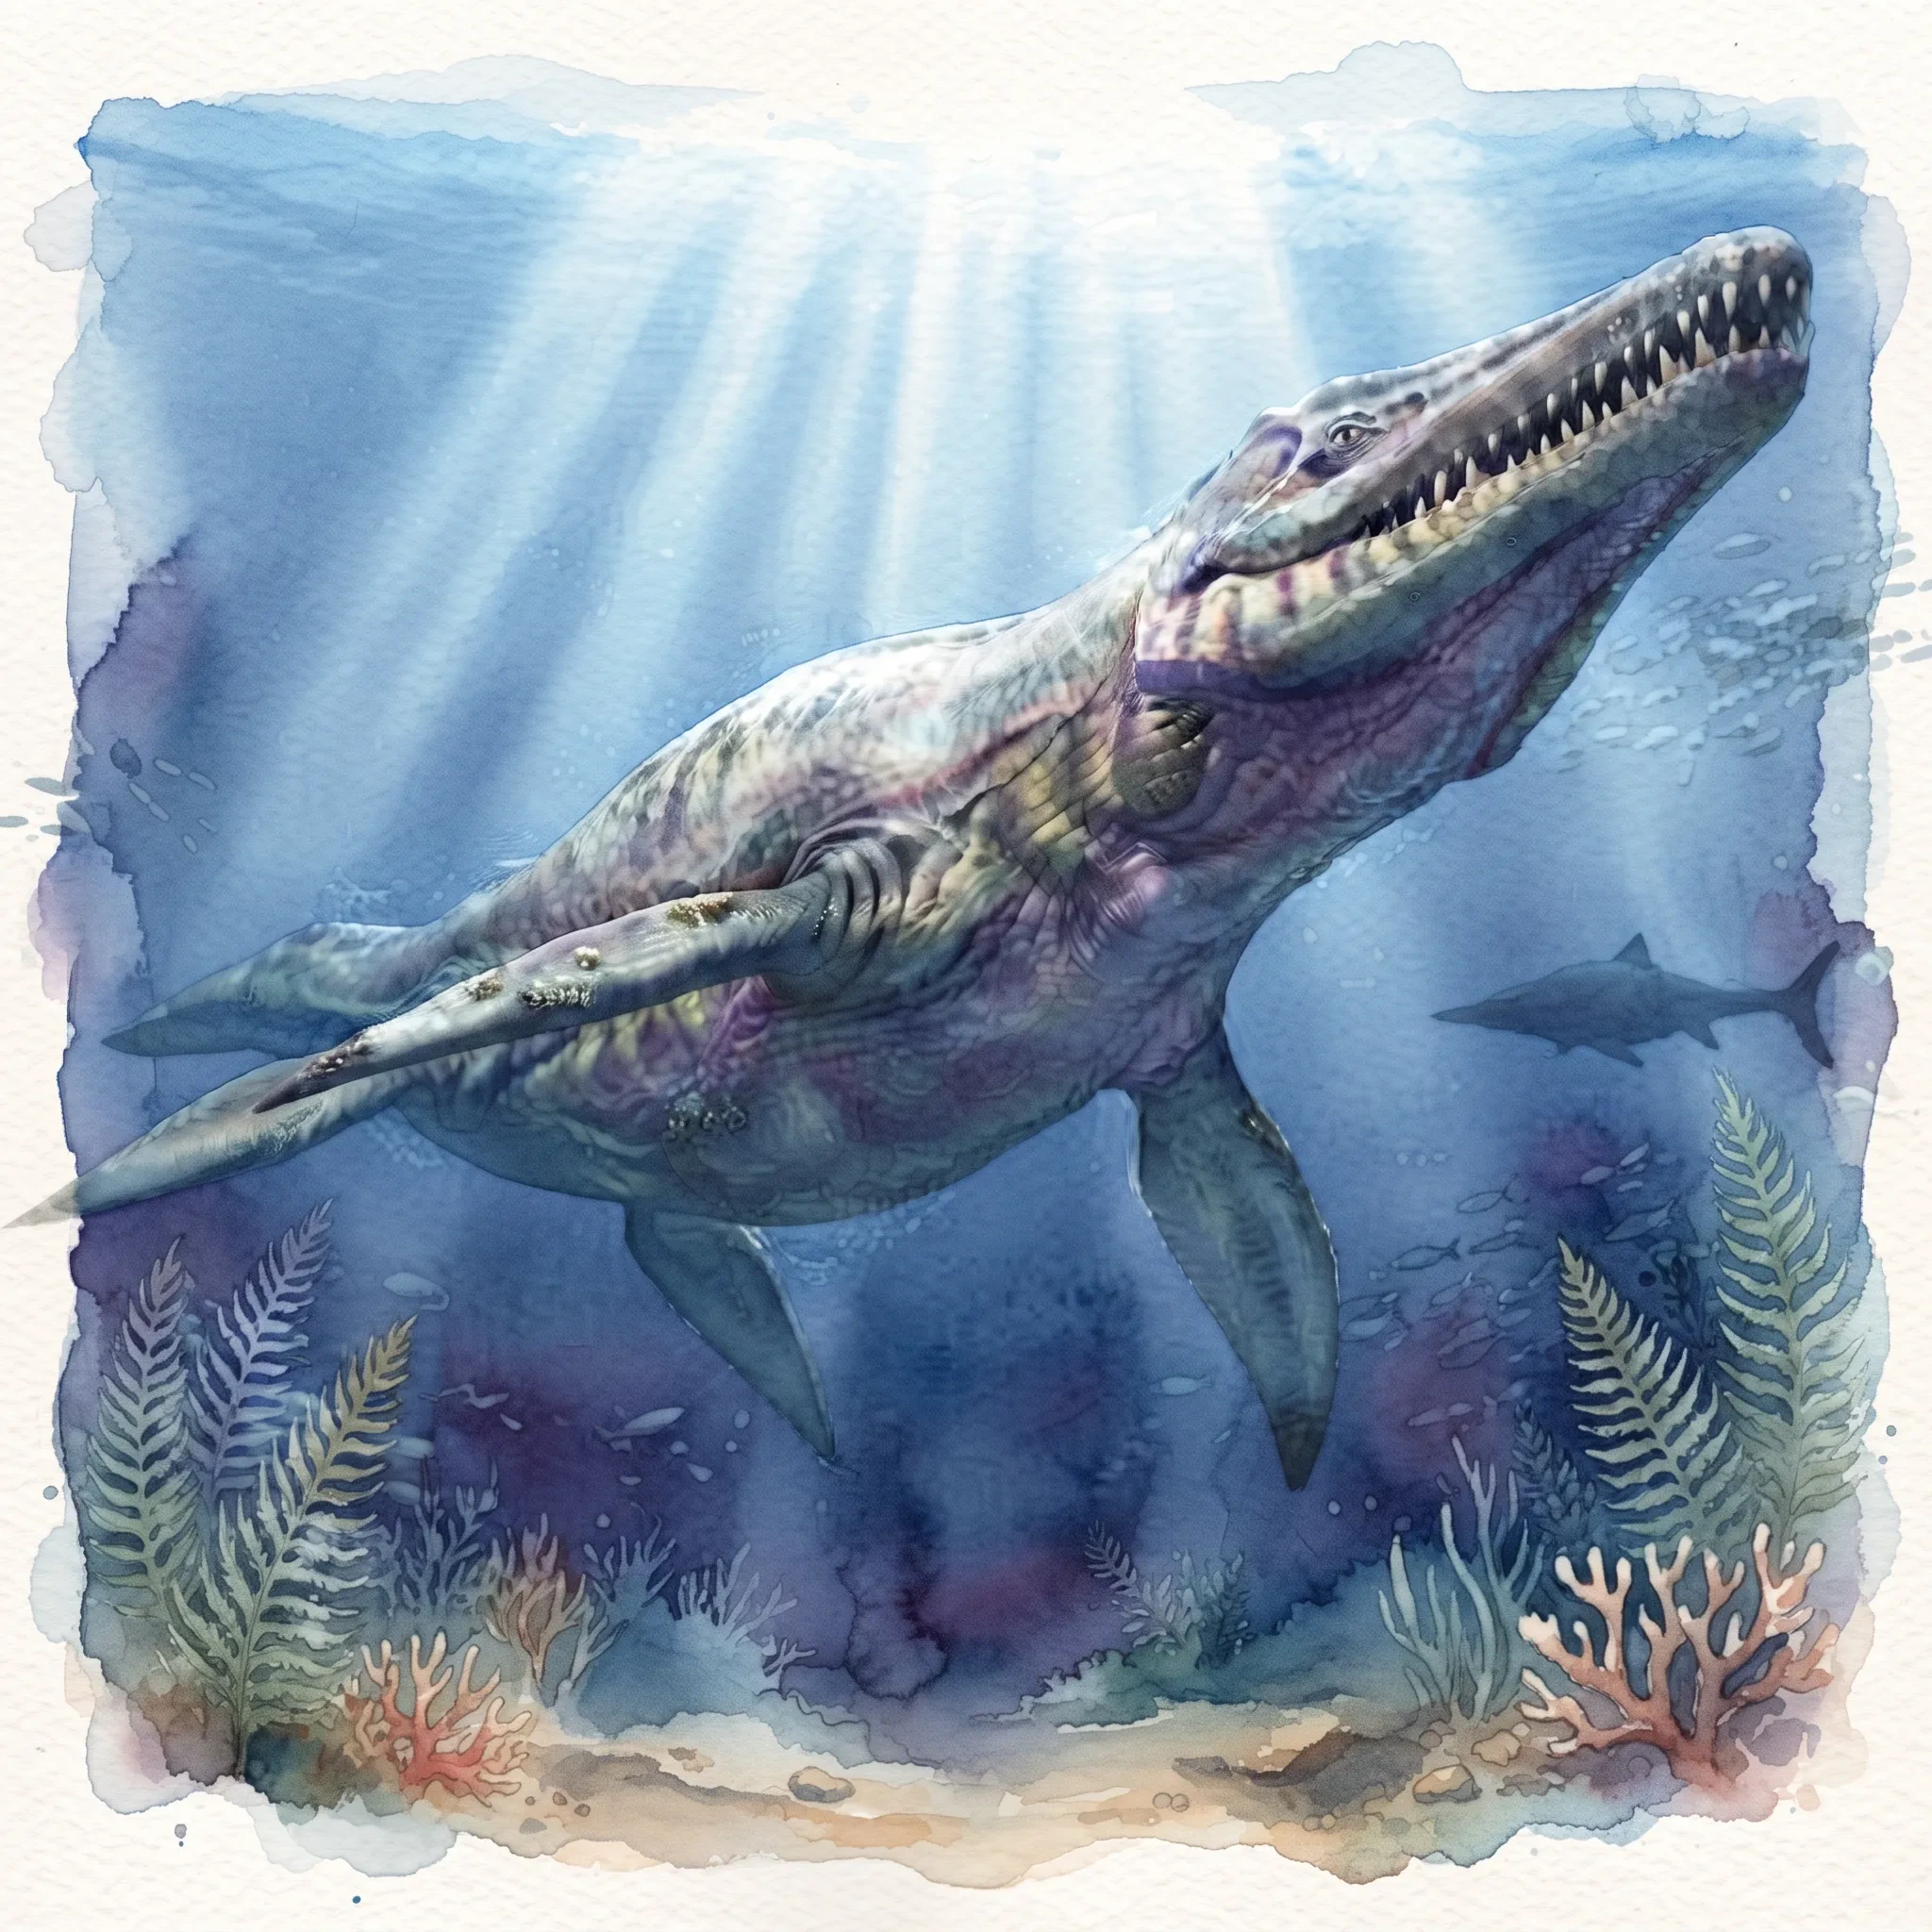
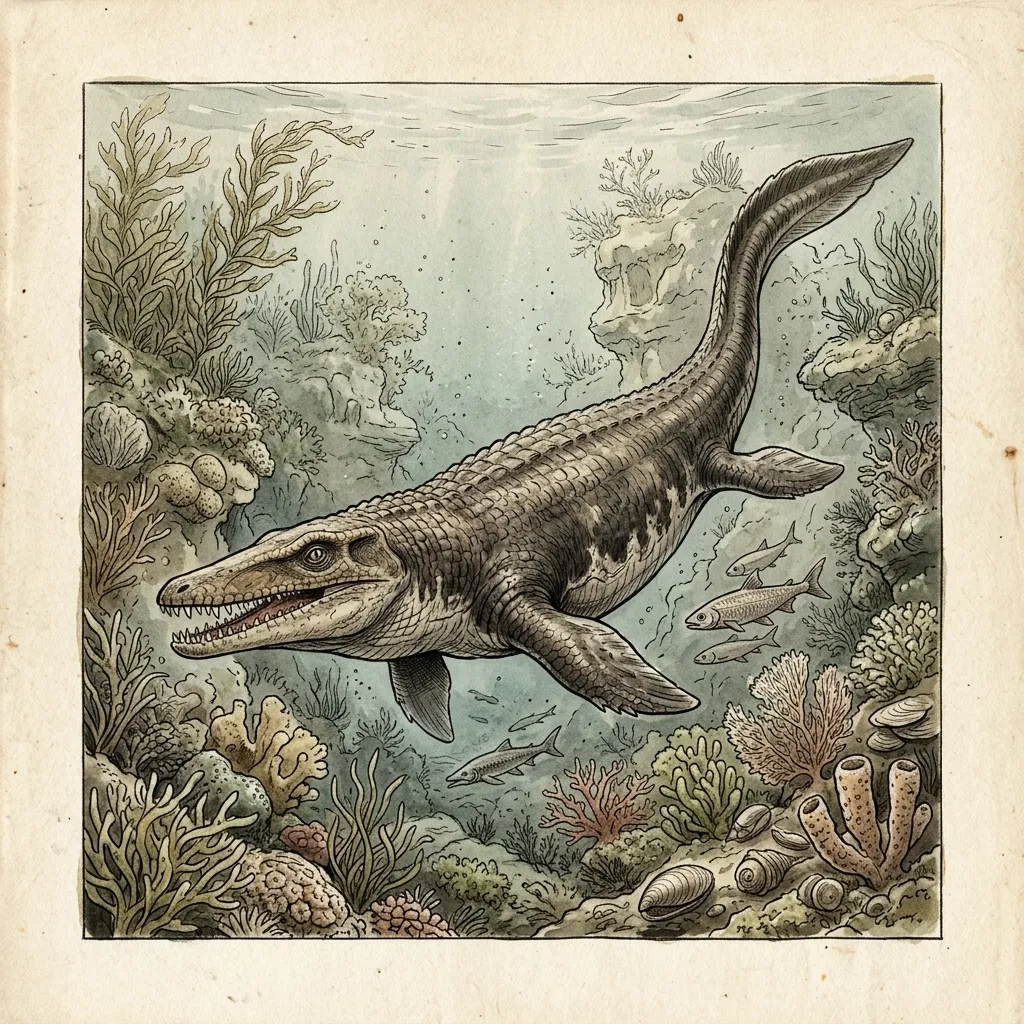
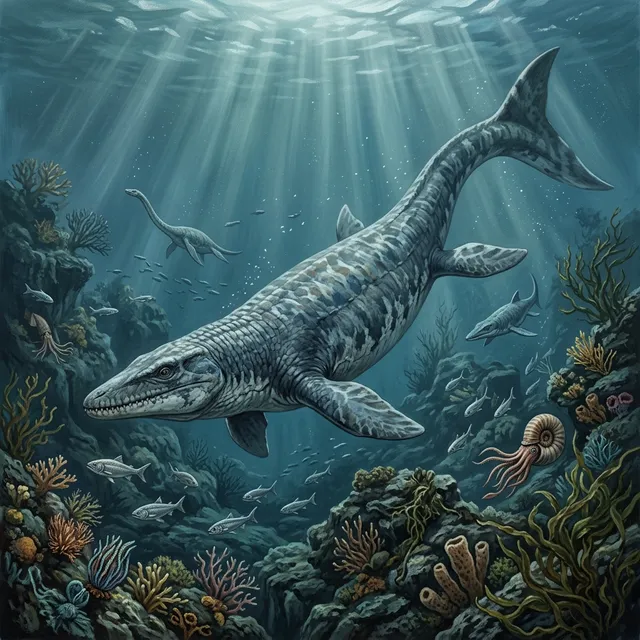
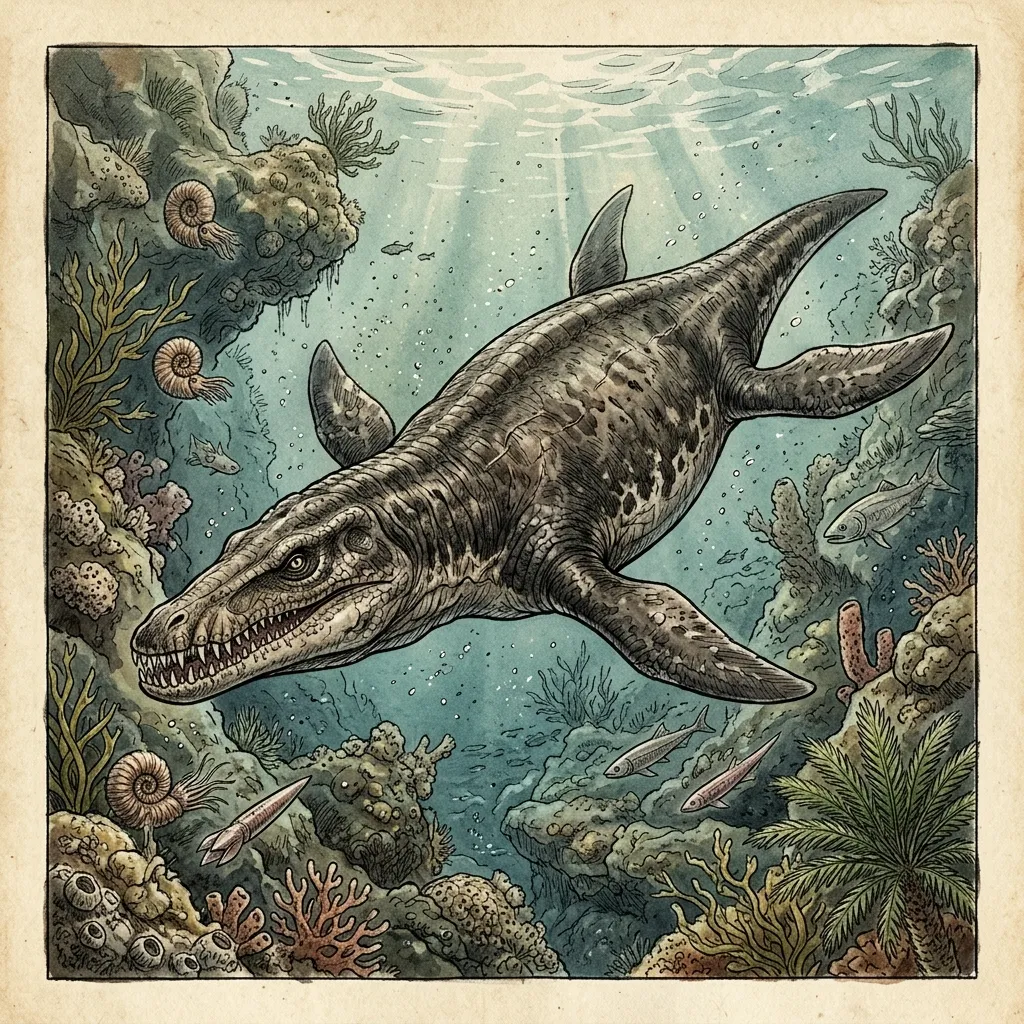
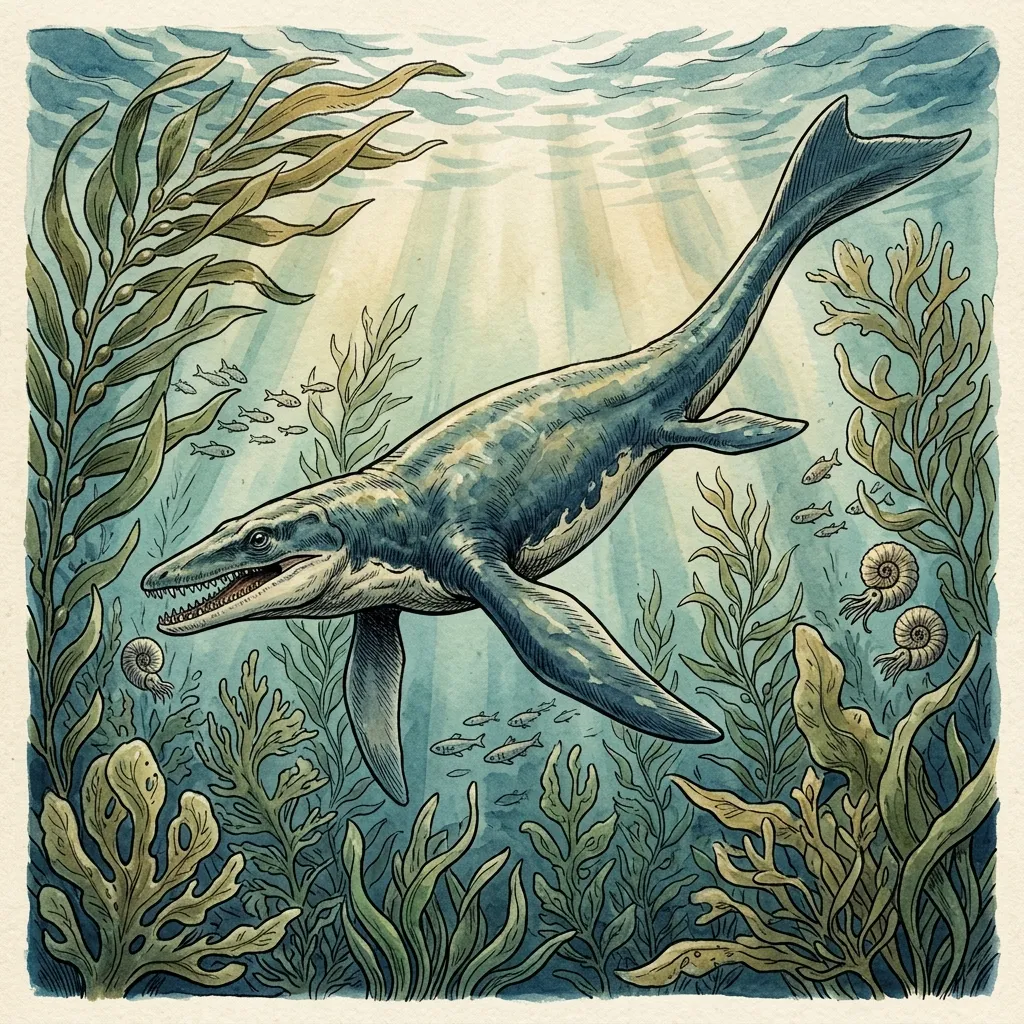
白亜紀後期に突如出現した海棲オオトカゲ(有鱗目)。魚竜絶滅後の空白となった海洋ニッチを電光石火の勢いで奪取し、全長15m級のティロサウルスやモササウルスが中生代末期の海を完全支配。
3. 水中生活への生理的ブレイクスルー:胎生と骨のヒレ化
陸棲爬虫類が海へ適応するためには、克服しなければならない巨大な生物学的障壁が存在しました。その最大の課題が「繁殖(産卵)」です。硬い卵殻を持つ羊膜類の卵は水中では呼吸できず溺死してしまうため、ウミガメのように陸へ上がって産卵するか、体内受精・体内発生させるしかありません。
ドイツ・ホルツマーデン産のステノプテリギウス化石などからは、母親の胎内から尾から順に子供を出産している決定的瞬間が奇跡的に保存された化石が多数発見されており、魚竜や首長竜、モササウルス類が「完全な胎生(あるいは卵胎生)」を獲得していたことが証明されています。また、指の骨の節数が極端に増加する「多指症・多指骨症(Hyperphalangy)」により、柔軟で強靭なパドル状ヒレを生み出しました。
4. 収斂進化の極致と海洋生態系ピラミッド
魚竜(爬虫類)とイルカ(哺乳類)、マグロ(魚類)が、全く異なる祖先から出発しながら瓜二つの流線型体型に行き着いた現象は、進化生物学における「収斂進化(Convergent Evolution)」の最高のお手本です。水という高密度の流体中で最も抵抗を減らす物理法則が、億年の時を超えて共通の形態を彫り出しました。
中生代の海には、アンモナイト、ベレムナイト(古代イカ)、巨大硬骨魚類(シファクティヌス等)、巨大サメ類(クレトキシリナ等)がひしめき合い、陸上以上に熾烈で巨大な食物連鎖ピラミッドが成立していました。なお、魚竜は白亜紀中期の海洋無酸素事変等の環境変動により一足早く姿を消していましたが、白亜紀末まで海洋を支配した首長竜やモササウルス類は、約6,600万年前の小惑星衝突に伴う光合成停止(植物プランクトンの壊滅的激減)と食物連鎖の崩壊によって幕を閉じたと考えられています(近年の地球科学・古生物学における最有力説)。